




こんにちは。My Garden 編集部です。
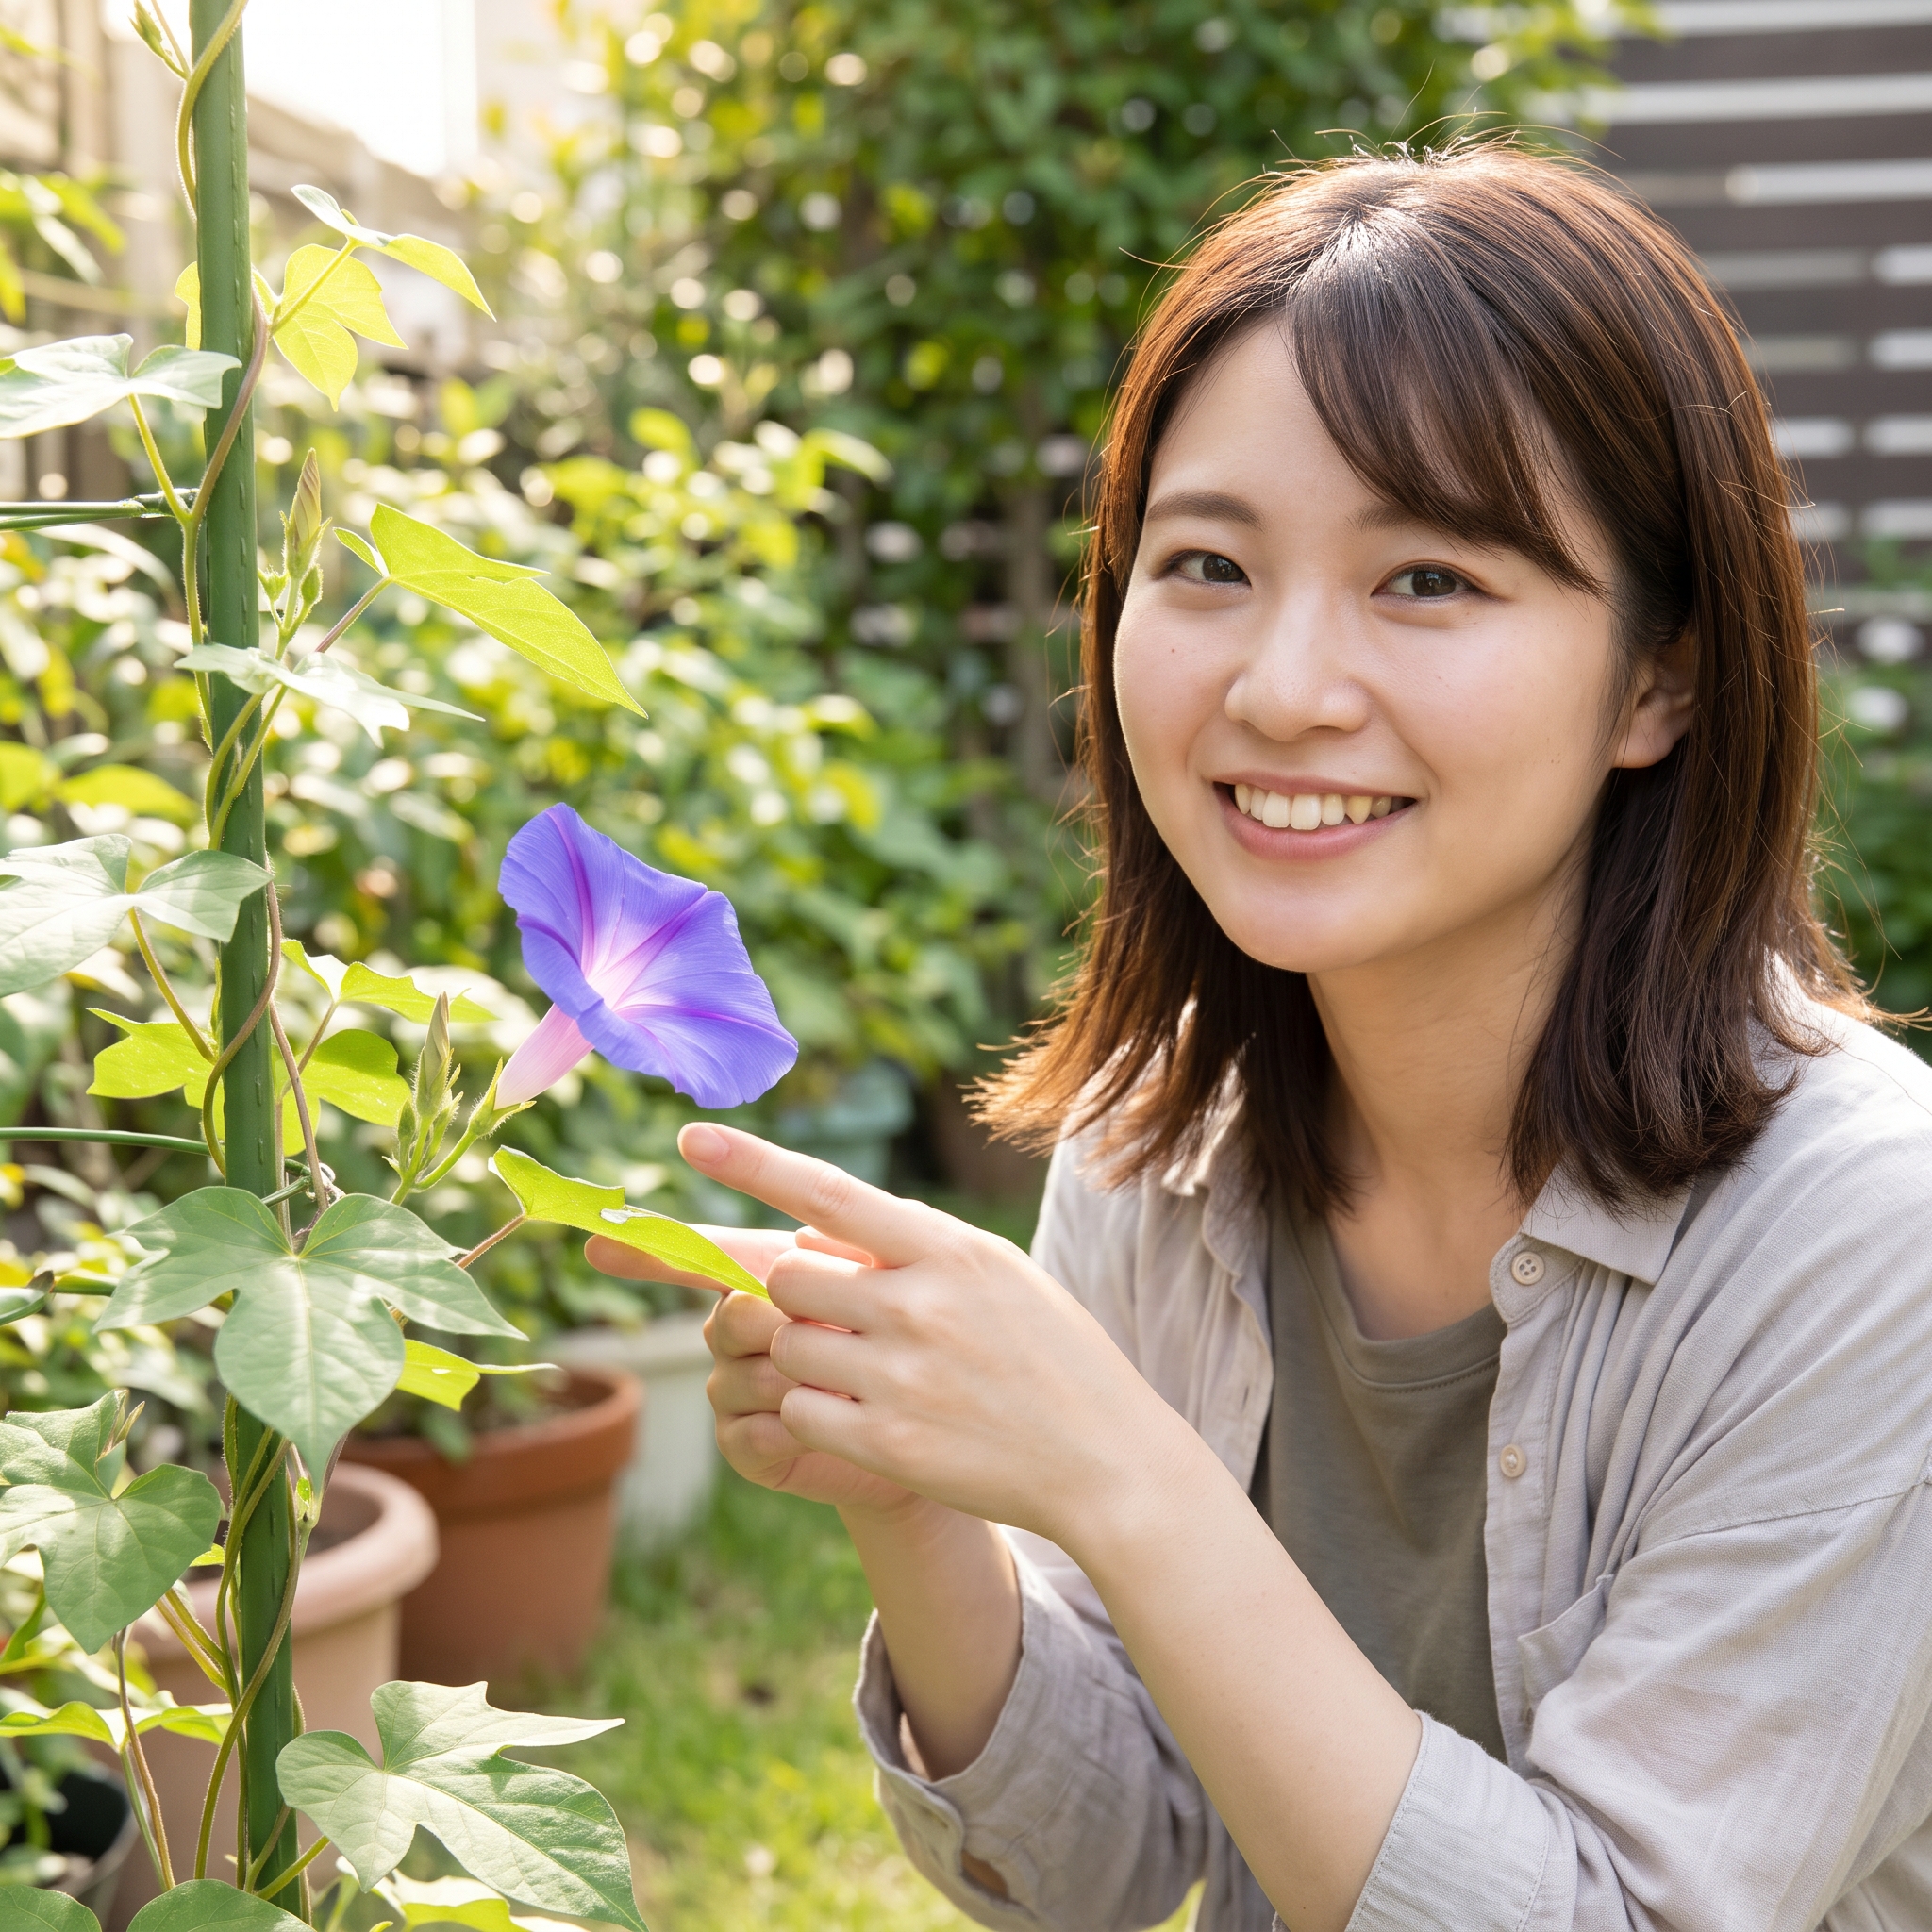
夏の早朝、澄んだ空気のなかで瑞々しく咲き誇るアサガオの姿を目にすると、爽やかな涼気とともに季節の訪れを実感しますよね。小学生の頃に朝顔セットの植木鉢へ種をまき、支柱を立ててつるの巻き付き方を観察したり、色水を作って遊んだりした思い出を持つ方はとても多いのではないでしょうか。
そんなもっとも身近な園芸植物といえるアサガオですが、小学校高学年や中学校の理科の授業で「アサガオの花は合弁花である」と教わった際、思わず首をかしげてしまった記憶はありませんか。あのメガホンやラッパのように途切れなく丸く広がる大きな花冠を見ていると、どう見ても一枚のつながった丸い花びらにしか見えず、なぜサクラやエンドウのように花びらが何枚もある花と同じ仲間や対比として語られるのか、いまいち納得がいかなかったという疑問は今でも頻繁に耳にします。
実際、アサガオ合弁花というキーワードで調べてみると、「花びらの枚数はテストで何枚と答えるべきなのか」「なぜ一枚に見えるのに合弁花とされるのか」「離弁花との決定的な違いはどこにあるのか」、さらにはツツジやタンポポ、ツバキといった身近な植物との見分け方に頭を抱えている方がたくさんいらっしゃることがわかります。
学校の定期試験や高校入試を控えて理科の分類体系をすっきり整理したい学生さんはもちろんのこと、日頃から家庭菜園やお庭のガーデニングで植物に親しんでいる大人にとっても、植物の形態や分類のルールを知ることは知的好奇心を刺激する最高に面白い探求です。一度その立体的な仕組みや発生の理由を体系立てて理解してしまえば、日頃の植物観察やお散歩の風景がまったく新しい解像度で見えてきます。
この記事では、アサガオが合弁花に分類される解剖学的および発生学的な真実、花冠の表面に走る筋に秘められた秘密、理科のテストで狙われやすいポイント、さらには紛らわしい他の植物との確実な見分け方に至るまで、植物が大好きな私の視点からどこよりも詳しく、徹底的に解き明かしていきます。
読み終えた頃には、アサガオの花びら一枚一枚に宿る驚くべき工夫や、過酷な自然界を生き抜くための進化の歴史が立体的に見えてくるはずです。ぜひじっくりと楽しんで読み進めてみてくださいね。
- アサガオが合弁花に分類される解剖学的および発生学的な理由
- 双子葉類と単子葉類における分類ルールと花冠構造の違い
- タンポポやツツジやツバキなど間違いやすい代表的な植物の確実な見分け方
- 中学理科や入試対策に役立つ重要ポイントと覚えやすい語呂合わせ
- アサガオが合弁花に分類される理由と花の構造
- アサガオなどの合弁花を見分ける基準とテスト対策
アサガオが合弁花に分類される理由と花の構造
アサガオの花をじっくりと観察してみると、誰しもが「継ぎ目がまったく見当たらないのに、なぜこれが複数の花びらからできていると言えるのだろう?」という根源的な疑問に突き当たります。朝の光を受けて丸く広がる花冠は、まるで薄手のシルクを丸く仕立てたかのように滑らかで、境界線らしき隙間はどこにも見当たりませんよね。
しかし、植物の発生段階やつぼみの成長プロセス、さらには進化の足跡を解剖学的にたどっていくと、アサガオの花冠には複数の花弁が強固に手を結び合った決定的な証拠が数多く刻まれているのです。ここでは、植物分類体系の根底を支える双子葉類と単子葉類という大きな枠組みから整理し、アサガオがなぜ5枚の花弁を持つ合弁花として位置づけられるのか、その驚くべき内部構造と発生の全容を余すところなく解明していきましょう。
双子葉類と単子葉類における分類上の違い
植物の形や生態を深く理解していくための第一歩となるのが、被子植物を二分する基本体系である「双子葉類(そうしようるい)」と「単子葉類(たんしようるい)」の明確な区分です。アサガオの花冠の構造を論理的に読み解く土台として、まずはこの分類体系の全体像を正確におさらいしておきましょう。
種子によって子孫を残す被子植物は、種子が発芽した瞬間に最初に展開する葉、すなわち「子葉(しよう)」の枚数によって2大グループへと大別されます。地面から顔を出した最初の一歩において、2枚の子葉を広げるグループが双子葉類であり、1枚のみを展開するグループが単子葉類です。
初夏にアサガオの種子を播いたときの光景を思い出してみてください。暗褐色の硬い種皮を押し破って土の上に現れるのは、チョウが羽を休めているかのような、中央にくびれを持った幅広の2枚の子葉ですよね。この発芽直後の姿そのものが、アサガオが紛れもない双子葉類の一員である動かぬ証拠なのです。
栄養器官と生殖器官に現れる全身の連動性
双子葉類と単子葉類の境界線は、単に子葉の数という発芽時の一過的な形態にとどまりません。葉の葉脈、根の伸長パターン、茎内部の維管束配置に至るまで、植物体全体のあらゆる部位に美しく整合的な特徴が現れます。
双子葉類の葉を観察すると、中心を通る太い主脈から細い側脈が枝分かれし、網目状に隈なく張り巡らされた「網状脈(もうじょうみゃく)」を形成します。アサガオの青々とした葉も、見事な網状脈を描いていますよね。一方、単子葉類であるイネ、コムギ、トウモロコシ、ササなどの葉を観察すると、基部から先端に向かってスジがまっすぐ平行に伸びる「平行脈(へいこうみゃく)」が発達しています。
土の中に広がる根系のアーキテクチャにも根本的な違いが存在します。双子葉類では、胚軸からまっすぐ下に向かって太い「主根(しゅこん)」が地中深くへと貫入し、そこから幾重にも「側根(そっこん)」が分岐して土壌をしっかりと把持します。これに対して単子葉類は、主根の成長が初期に停止し、茎の基部から細い同等の太さを持つ根が無数に放射状に広がる「ひげ根」を形成するのです。
さらに茎の横断面を顕微鏡で覗いてみると、水や無機養分を吸い上げる道管と光合成産物を運ぶ師管が束になった「維管束(いかんそく)」の配列にも規則的な違いが現れます。双子葉類では維管束が美しい環状(輪状)に整然と整列し、その間に形成層が存在するため茎が太く成長できます。対照的に単子葉類の維管束は、茎の断面全体に散在するように散らばって配置されており、明瞭な形成層を持たないことが一般的です。
| 分類群 | 子葉の数 | 葉脈の形態 | 根系の構造 | 茎内部の維管束 | 花の器官数(基準) | 代表的な植物種 |
|---|---|---|---|---|---|---|
| 双子葉類(真正双子葉類) | 2枚 | 網目状に広がる網状脈 | 太い主根と側根が分岐 | 輪状(環状)に整然と配置 | 4または5の倍数(五数性など) | アサガオ、ヒマワリ、サクラ、アブラナ、エンドウ |
| 単子葉類 | 1枚 | 縦に走る平行脈 | 太い軸のないひげ根 | 茎の横断面全体に散在配置 | 3の倍数(三数性) | イネ、トウモロコシ、ユリ、チューリップ、ツユクサ |
このように、アサガオというひとつの植物を俯瞰したとき、2枚の子葉、網状脈の葉、主根と側根からなる地下茎、輪状に並んだ維管束という、双子葉類のあらゆる診断形質が完璧に満たされていることが分かります。
植物を観察する際は、花だけでなく葉脈や根の形状をトータルで確認することが極めて重要です。アサガオは体の全器官において双子葉類の典型的な特徴を示しており、この確固たる土台の上に「合弁花」という花冠の特性が成立しています。
そして植物分類学では、この双子葉類という大きな枠組みを、花弁の結合状態という生殖器官の構造的基準に基づいて、さらに「合弁花類」と「離弁花類」という2つの系統群へと区分します。アサガオの植物学的な位置づけを正しく理解するためには、被子植物・双子葉類という上位の階層を確実に確定させたうえで、花弁の癒合度合いという下位の形質へと進む階層的視点が不可欠となるのです。
単子葉類に合弁花や離弁花の区別がない理由
学校教育の理科や植物分類の学習において、多くの学習者が思わぬ混乱に陥る典型的な盲点が「ユリやチューリップは、花びらがくっついているのか離れているのか」という疑問です。端正な花を咲かせるユリやチューリップを眺めながら、「これは合弁花なのかな、それとも離弁花なのかな」と思い悩んだ経験のある方も少なくないのではないでしょうか。
しかし結論から申し上げますと、植物形態学および分類学において、「合弁花」および「離弁花」という概念は、双子葉類に対してのみ適用される分類基準です。したがって、ユリ、イネ、トウモロコシ、ツユクサ、チューリップなどの単子葉類に対しては、合弁花とも離弁花とも呼ぶことはなく、分類体系の定義上、完全に適用対象外となります。
がくと花弁の未分化性がもたらす「花被」という概念
なぜ単子葉類には合弁・離弁の区別が適用されないのでしょうか。その根本的な理由は、単子葉類の花が持つ形態形成の歴史と、器官分化の成り立ちにあります。
アサガオをはじめとする双子葉類の花を観察すると、一番外側に花全体を保護する緑色の「がく(萼片)」が存在し、その内側に鮮やかな色彩で送粉者を惹きつける「花弁(花びら)」が配置されています。このように、がくと花弁が外観・機能ともに明確に分化している花を「異花被花(いかひか)」と呼びます。花弁という独立した器官がはっきりと定義できるからこそ、その花弁同士がくっついているか(合弁)、基部まで独立しているか(離弁)という議論が成立するわけです。
対照的に、単子葉類の花の多くは、花弁とがくの形態的・色彩的な差異が未分化な「同花被花(どうかひか)」と呼ばれる構造を保持しています。身近なユリの花を例にとって解剖学的に観察してみましょう。
白やピンクの大きな花びらが6枚美しく開いているように見えますが、外側から注意深く触れてみると、外側の3枚(外花被:がくに相当)と、内側の3枚(内花被:花弁に相当)が互い違いに重なり合っていることが分かります。見た目の質感や色合いはほぼ同一であり、花弁とがくを明確に二分することが困難であるため、植物学ではこれらを総称して「花被片(かひへん)」あるいは「テパル(Tepal)」と呼びます。
単子葉類の花器官は基本的に「3の倍数(三数性)」で構成されており、花被片が3枚の外花被+3枚の内花被という二重構造をとるケースが一般的です。器官の発生学的な起源や分化パターンが双子葉類の「がく」や「花弁」とは根本的に異なるため、双子葉類の分類枠組みである合弁花・離弁花の物差しをそのまま当てはめることができません。
さらに、風媒花として極限まで構造を簡素化させたイネやトウモロコシなどのイネ科植物に至っては、色鮮やかな花弁そのものが退化・消失し、穎(えい)と呼ばれる特殊な鱗片状の器官が雄しべや雌しべを保護しています。このような植物に対して花弁の癒合度合いを論じること自体が、生物学的に成立しないのです。
定期試験や高校入試の分類問題において、選択肢の中に「ユリ」や「チューリップ」が紛れ込んでいるケースは頻出のひっかけ問題です。「花びらが基部でくっついて見えるから合弁花だろう」と早合点して選んでしまうと、手痛い失点を招くことになります。単子葉類を見かけたら、合弁花・離弁花を判別する以前に、真っ先に選択肢から除外する冷静な判断力を身につけておきましょう。
以上の理由から、アサガオが合弁花であると語る際には、まず単子葉類という異質なグループをしっかりと切り離し、双子葉類という確定した階層の枠内において、花弁同士がどのような様式で癒合しているのかという視点に立つことが極めて重要な前提となるのです。
1枚に見える花びらが5枚とされる形態的根拠
アサガオの花冠を手に取って四方八方から眺めてみても、サクラのように一枚一枚の花びらがハラハラと分かれている様子は微塵も感じられません。丸い朝顔の花冠は、どこをどう見ても継ぎ目のない一枚の滑らかな膜状構造に見えますよね。そのため、「どうしてこれが1枚の花びらではなく、5枚の花びらだと断言できるのか?」と疑問を抱くのは、観察者として極めて自然で健全な感覚です。
しかし、植物解剖学、器官学、そして微細な発生プロセスの見地から下される学術的な結論は、「アサガオの花弁数は1枚ではなく、本来独立していた5枚の花弁が高度に側方合着した集合体である」というものです。目に見える完成形が一枚の筒であっても、植物学者はなぜ頑なに「5枚」と記述するのでしょうか。
花芽形成の極初期に見られる花弁原基の独立
その最大の決定打となるのが、植物の茎頂組織において花芽(はなめ)が作られる発生初期プロセスの解明です。植物の器官がどのように作られるかを顕微鏡下で微細に追跡していくと、完成形からは想像もつかない劇的な形態変化が目撃されます。
アサガオの花芽が茎の先端に分化し始めたごく初期のステージでは、最初から漏斗状の筒型組織が形成されるわけでは決してありません。まず最初に、一番外側を囲む5枚のがく片の原基が独立して生じます。そしてそのすぐ内側に、球状の小さな細胞塊として「5つの独立した花弁原基」が、リング状に等間隔でぽこぽこと顔を出します。
この発生の初期段階において、5つの花弁原基は互いにまったく接触しておらず、それぞれが完全に独立した突起として存在しています。つまり、発生のスタート地点において、アサガオの花弁はサクラやアブラナと同じように、紛れもない「離生した5枚の花弁」として生命の歩みを始めているのです。
アサガオの合弁花冠は最初から一枚として生まれるのではなく、独立して発生した5つの花弁原基が、成長の途中で側方組織同士を細胞分裂によって癒合(合着)させることで形成されます。この発生学的事実こそが、アサガオの花弁数が「5枚」であると断定される最大の根拠です。
発生が進むにつれて、隣り合う花弁原基の境界部分にある介在組織(原基間組織)が活発な細胞分裂を開始します。この分裂運動によって隣接する花弁原基同士が側方で隙間なく物理的に架橋・結合し、一体化した組織の輪(花冠筒の基部)が構築されます。
ひとたび側方の合着が完了すると、今度はその結合組織全体が同調して縦方向へと劇的に伸長成長を開始します。結合したリング状組織が上方へと一気にせり上がり、漏斗状に外側へと大きくラッパのように広がることで、私たちが目にする切れ目のない美しいアサガオの花冠が完成するのです。
このように、見た目の完成形は一体化した単一の構造物に見えたとしても、形態発生の歴史と細胞の系統関係をたどれば、それは間違いなく5枚の相同器官が二次的に結合した姿にほかなりません。自然界が織りなすこの精緻な合体メカニズムを知ると、朝露に濡れるアサガオの花冠が、何層もの生命の神秘を包み込んだ高度な建築物のように見えてきますね。
花びらの中央を走る曜が示す合着のサイン
「発生の初期に顕微鏡で見れば5つに分かれているのは分かったけれど、肉眼で咲いている花を見ただけで5枚だと納得できる証拠はないの?」と思われる方もいらっしゃるかもしれません。もちろん、特殊な顕微鏡装置を使わずとも、庭先に咲くアサガオを肉眼でじっくり観察するだけで、5枚の花弁が結合している確固たるサインを誰でも明瞭に確認することができます。
晴れた朝、咲いたばかりのアサガオの花を真正面から覗き込んでみてください。花の中心にある白い筒状の底から、外側の円周に向かって、星の光のように放射状に力強く伸びる5本の太い筋がくっきりと見えませんか。この筋のことを、植物学および伝統的な園芸の世界では「曜(よう)」と呼びます。
この「曜」の存在こそが、かつて独立していた5枚の花弁の痕跡を現代に伝える、何より雄弁な形態学的証拠なのです。
花弁の中肋としての「曜」の解剖学的正体
植物形態学において、花弁やがく片といった花を構成する諸器官は、すべて大昔の祖先型植物が持っていた「葉」が進化の過程で特殊化・変態したもの(相同器官)であることが定説となっています。葉の構造を思い出してみると、中央を縦に貫く一番太い葉脈である「主脈(中肋:ちゅうろく)」が存在し、そこから細い側脈が広がって葉全体の骨格を支えていますよね。
花弁も葉の変形物である以上、一枚一枚の花弁の中心には、葉の主脈に相当する太い維管束と厚みのある組織が必ず通っています。アサガオの花冠に見られる5本の「曜」は、まさに合体する前の独立した5枚の花弁の中央を縦走していた主脈(中肋)そのものなのです。
アサガオの花冠において、曜と曜の間に位置するやや薄手の膜状部分は、隣り合う花弁同士が側方で合着した接合境界部にあたります。曜の部分は内部に太い維管束が通り、細胞層も厚く強固に作られているため、花冠全体を放射状に支える傘の骨(リブ)のような構造力学的役割を果たしています。
曜の構造を理解したうえで、今度は花冠の最も外側にある円周の縁(フチ)の部分を虫眼鏡などで精緻に観察してみましょう。遠目には完全な円形に見える花冠の輪郭ですが、よく見るとわずかに波打っており、5本の曜が到達する先端部分がほんの少しだけ外側に突出して、かすかな「五角形」を描いていることに気づきます。
さらに品種によっては、曜と曜の中間点、すなわち花弁同士が貼り合わされた境界部分に、ごく浅い切れ込み(浅裂:せんれつ)が認められる個体も珍しくありません。この五角形の頂点や浅い切れ込みは、かつて独立した5枚の花弁の先端であった輪郭が、合体後も完全に消去されずに残された微細な名残なのです。
花冠を裏側から日光に透かして見てみると、5本の太い曜から左右の合着面に向かって、細かな側脈が規則正しく走っている様子までもが鮮明に浮かび上がります。まさに5枚のパラシュートが互いに手を取り合って円陣を組んでいるかのようなその幾何学的な美しさは、アサガオが合弁花であることを私たちに静かに教えてくれているのです。
がくや雄しべの数と一致する五数性の特徴
アサガオの花弁が5枚である証拠は、花冠表面の曜だけにとどまりません。花を構成するすべてのパーツを俯瞰したとき、そこに驚くほど厳格に貫かれている自然界の数学的秩序、すなわち「五数性(ごすうせい)」の存在に目を向ける必要があります。
植物分類学において、アサガオが属する真正双子葉植物(Eudicots)の多くは、花の各構成要素が「4」または「5」の倍数で分化・配置される強い同調傾向を持っています。その中でもアサガオは、花全体の基本設計図が徹底的に「5」という数字で統制されている、五数性の教科書のような植物なのです。
同心円状に配置された各花器官の数量的一致
花冠から視線を移し、花の根元を支えている緑色のパーツ「がく片(萼片:がくへん)」に注目してみましょう。アサガオの花を裏側から観察すると、先端が細長く尖った毛深い緑色のがく片が確認できます。これを1枚ずつ数えてみると、寸分の狂いもなくぴったり「5枚」存在します。しかもこのがく片は互いに合体しておらず、基部まで完全に独立した離生状態を保っています。
次に、役目を終えて自然にポトリと落ちたアサガオの花冠を拾い上げ、カッターや指先で縦に真っ直ぐ裂いて内部を展開してみましょう。花筒の内壁を観察すると、底に近い部分からすらりと伸びる「雄しべ(雄ずい)」が姿を現します。この雄しべの本数を数えてみると、多少の長さの高低差(長短不同)はあるものの、確実に「5本」が等間隔で配置されていることが分かります。
| 花器官の名称 | 数量 | 組織の結合状態 | 解剖学的特徴と生物学的役割 |
|---|---|---|---|
| がく片(萼) | 5枚 | 完全に独立(離生) | 先端が鋭く尖り毛が生える。つぼみの幼小期に花冠や生殖器を外敵・乾燥から防護 |
| 花弁(花冠) | 5枚(合着) | 側方が癒合し漏斗状(合生) | 5本の太い曜(主脈)を有し、開花時に広がることで視覚的誘引と着地面を提供 |
| 雄しべ(雄ずい) | 5本 | 花糸基部が花冠内壁に合着 | 花糸の長さが長短不同。成熟した葯から大量の花粉を放出して受粉を促進 |
| 雌しべ(雌ずい) | 1本(3心皮) | 3室に区画された合生子房 | 頂部に球状の柱頭を持ち、子房内部には各室2個ずつ合計6個の胚珠を内包 |
外側から順に構造をたどっていくと、「がく片が5枚」「花弁が5枚(合着)」「雄しべが5本」と、同心円上に綺麗に「5」のシンメトリーが成立していることがわかりますよね。もし仮に、花冠だけが突然変異でたった1枚の単一器官として発生しているのだとしたら、なぜそれを取り囲むがく片や雄しべが頑なに5の数を維持しているのか、形態学的に説明がつきません。
花式論が語るアサガオの幾何学
植物形態学では、花を構成する諸要素の構造的配置を数式のように記号化して記述する「花式(かしき)」という手法が用いられます。国際的な植物分類学の基準において、アサガオの花式は以下のように明確に表記されます。
K5 C(5) A5 G(3)
・K5(Calyx:萼): 5枚のがく片が互いに独立して離生していることを示します。
・C(5)(Corolla:花冠): 5枚の花弁が存在し、カッコで囲まれているのはそれらが組織的に合生(癒合)していることを意味します。
・A5(Androecium:雄ずい群): 5本の雄しべが独立して形成されていることを示します。
・G(3)(Gynoecium:雌ずい群): 3枚の心皮が合体した合生子房であり、下線は子房が他の花器官よりも上部に位置する「上位子房」であることを表します。
雌しべ(めしべ)の中心にある子房を水平にスライスしてみると、内部は隔壁によって正確に3つの部屋(室)に仕切られており、それぞれの部屋に2個ずつ、合計6個の胚珠(将来の種子)が規則正しく並んでいます。アサガオの実が熟したとき、殻の中からおよそ6個の黒いタネが収穫できるのも、この精密な内部設計図に基づいているのです。
がく、花冠、雄しべに見られるこの完璧な五数性の調和は、アサガオの花弁が本来5枚の独立したユニットとしてプログラムされていることの、これ以上ない強力な内部証拠と言えるでしょう。
離弁花との違いが分かる花冠の結合と散り方
合弁花類と、花弁が根元まで完全に独立している「離弁花類(りべんかるい)」の違いは、美しく咲き誇っている姿の差異にとどまりません。花が自らの生殖という最大の使命を果たし、寿命を迎えて散りゆく終末のドラマにおいて、その構造的相違はもっとも劇的な形で姿を現します。
離弁花の代表的な植物として誰もが思い浮かべるのは、日本の春の象徴であるサクラ(ソメイヨシノ)や、春の野山を彩るアブラナ(菜の花)、あるいはエンドウやバラなどですよね。春の終わりにサクラ並木を歩いているときの情景を心に浮かべてみてください。梢を揺らす一陣の風が吹き抜けると、無数の花びらが一枚ずつバラバラに宙を舞い、地面を淡いピンク色の花びらの絨毯で埋め尽くします。
離層の形成メカニズムに見る決定的な構造差
なぜサクラの花弁は、あれほど見事に一枚ずつ独立して散っていくのでしょうか。それは、離弁花の花弁がそれぞれ個別に花の土台(花床:かしょう)に直接付着しており、隣り合う花弁との間に組織的な繋がりを一切持たないためです。
受粉が完了して花の役目が終わると、植物ホルモン(エチレンなど)の指令によって、花弁1枚1枚の付け根の細胞層に「離層(りそう)」と呼ばれる特殊なコルク質の仕切りが形成されます。この離層が形成されると花床からの水分供給が遮断され、結合組織が自ら崩壊するため、風などのわずかな物理的刺激によって花弁が単独でポロポロと脱落していくのです。
では、合弁花であるアサガオの落花挙動はどうでしょうか。ベランダやお庭でアサガオを育てた経験のある方なら、アサガオの花びらが1枚ずつハラハラと風に舞い散る光景など、生涯で一度たりとも目にしたことがないはずです。
アサガオの花弁は細胞同士が横方向に隙間なく癒合して一体の構造ユニットを形成しているため、部分ごとに分離して散ることは構造力学的に不可能です。役目を終えたアサガオの花は、花冠全体がキュッとねじれるように窄まり、筒状の原型を保ったまま、あるいはひと塊の萎縮したキャップのような状態で花床からポトリと落下(凋落:ちょうらく)します。
この「花冠全体がまとまって一体のまま脱落するか、それとも花弁が1枚ずつ個別に散乱するか」という落花様式の差異は、合弁花類と離弁花類を現場で見極めるうえで、もっとも直感的かつ確実な観察指標となります。
系統進化学が解き明かす「後発の革新」
植物の化石記録や現代の分子系統樹をたどる系統進化学の視点に立つと、被子植物の進化史において、離弁花冠と合弁花冠は対等に並び立つ関係ではありませんでした。地球上に現れた最初期の原始的な被子植物(モクレン類など)は、花弁の数が定まっておらず、多数の花弁が螺旋状にバラバラに配置される「離弁花」が圧倒的な主流だったのです。
そこから白亜紀以降、昆虫類(ハチ、チョウ、甲虫など)との共進化が爆発的に加速するプロセスの中で、花器官の数が一定数(4や5)に固定化されるとともに、受粉の確実性を極限まで高めるための「後発的な形態革命」として、花弁同士が二次的に癒合した「合弁花冠」が派生してきました。
アサガオが属するナス目ヒルガオ科は、真正双子葉類の中でもキク類と呼ばれる、植物進化の歴史においてもっとも新しく、高度に特殊化したグループに位置しています。あのまとまって落ちる花冠の一片には、原始的な離弁花から何千万年もの時間をかけて洗練を重ねてきた、植物進化の最先端の知恵が凝縮されているのです。
特定の昆虫に受粉を促す合弁花の進化適応
なぜ植物たちは、祖先が持っていた「自由にバラバラに開く花弁」という身軽な構造を捨て去り、わざわざ組織を癒合させて「合弁花冠」という筒状の形態へと進化したのでしょうか。そこには、自らの遺伝子を確実に次世代へと繋ぐための、息をのむほど緻密で合理的な生存戦略が隠されています。
サクラ、ウメ、バラなどのオープンな離弁花を観察してみると、花弁が平皿のように全方位に向かって開いています。この構造は、あらゆる方向から飛来する不特定多数の昆虫にとって極めてアクセスしやすいという利点がある反面、植物側にとっては大きなリスクと非効率を孕んでいます。
花粉を運ぶ能力の低い小型のハエやアリが勝手に花粉を食べ散らかしてしまったり(盗蜜・花粉泥棒)、異なる種類の植物の花へと無秩序に飛び回って花粉を無駄遣いしてしまったりと、貴重な生殖エネルギーが著しく浪費されてしまうのです。
アクセス制限が生み出す専用送粉システム
こうした無駄を劇的に排除するために獲得された革新的な構造こそが、花弁を側方で癒合させて立体的なトンネルを構築する「合弁花冠(筒状・漏斗状花冠)」でした。
花弁を筒状に結合させることで、植物はもっとも貴重な報酬である「蜜腺(みつせん)」を、花筒の最深部という奥まった閉鎖空間に隔離して配置することが可能になります。これにより、花奥に届く長い口吻(こうふん)を持つ大型のスズメガやチョウ、あるいは筒の狭窄を押し広げて奥まで潜り込める力強い大型のハナバチなど、特定の優れた送粉者(ポリネーター)だけを選択的に招き入れる「専用アクセスライン」が確立されます。
ターゲットとなった昆虫が、奥深くの蜜を吸おうとして狭い花筒の中へと必死に頭や体を潜り込ませるとき、筒の内壁に計算され尽くした絶妙な角度で配置された雄しべの葯(やく)が、昆虫の頭部や背中にダイレクトに接触します。これにより、黄金色の花粉が余すところなく昆虫の微毛へと塗りつけられます。
そして、特定の植物の花蜜に強い執着(訪花選好性)を持つその送粉昆虫が、次なる同種のアサガオの花へと飛び移り、同様に奥へ潜り込もうとした瞬間、背中に付着した花粉が筒の入り口付近で待ち受ける雌しべの柱頭へと確実に擦り付けられるのです。
無差別な開放から、特定のパートナーとの排他的な協調関係へ――。合弁花冠という構造は、花粉の散逸ロスを最小限に抑え、同種間での受粉成功率を飛躍的に高めるために植物が獲得した、極めて洗練されたバイオメカニズムの結晶と言えるでしょう。
早朝に花筒の中で完了する自家受粉の仕組み
特定の昆虫との高度な共進化によって合弁花冠を発達させたアサガオですが、ここでひとつの重大な疑問が生じます。アサガオの花は、夏の早朝に咲いて昼前には速やかにしぼんでしまう、いわゆる「一日花(いちにちばな)」ですよね。開花している時間はほんの数時間しかありません。
もし開花した早朝に激しい雨が降ったり、強い風が吹き荒れたりして、媒介者となる昆虫が一匹も飛来しなかったらどうなるでしょうか。一日で花冠がしおれてしまうアサガオにとって、送粉者の訪れをただ受動的に待つだけでは、種子を残せないまま一生を終えてしまう致命的なリスクと常に隣り合わせになってしまいます。
この過酷な生存競争を勝ち抜くために、アサガオは筒状の合弁花冠の内部空間を最大限に利用した、驚くべき「自給自足の自家受粉(同花受粉)システム」を完成させました。
開花前夜から早朝にかけて繰り広げられる雄しべの追越劇
アサガオがつぼみから開花に至る数時間のあいだ、花筒の奥深くでは、人間の目には止まらないダイナミックな生殖運動が繰り広げられています。
開花前日の夕方の時点では、雌しべの柱頭は高い位置にあり、5本の雄しべはまだ花筒の低い位置で短くとどまっています。ところが、深夜から早朝にかけて開花シグナルが作動すると、花筒の伸長成長に同調して、雄しべの花糸(かし)が急激な細胞伸長を開始します。
早朝、花冠がラッパ状に開き始めるまさにその瞬間、急速に背を伸ばした雄しべの葯が、中央に鎮座する雌しべの柱頭のすぐ真横をすれ違いざまに通過します。このすれ違いの決定的瞬間、すでに成熟して開裂していた葯から、花粉が雌しべの受粉面(柱頭)へと直接、物理的に塗りつけられるように擦過転移するのです。
これによって、アサガオの花が完全に開き、私たちが朝の庭で「綺麗に咲いたな」と見上げる時間帯には、花筒の奥で誰の手も借りずに受粉プロセスが完璧に完了しています。昆虫の訪花による他家受粉の可能性を排除しないオープンな構造を保ちつつも、最悪の気象条件であっても確実に100%子孫を残せるよう、花筒の中で完結するセーフティネットが二重に張り巡らされているわけです。
受粉が完了した後の子房や雌しべは、極めてデリケートで水分を失いやすい組織です。アサガオが日中の強い直射日光が照りつける前に素早く花冠を萎縮させ、開花を昼前には終わらせてしまうのも、受粉という重大なミッションを無事に終えた大切な生殖器を、強烈な紫外線や熱、乾燥ストレスから厳重に保護するための、極めて無駄のない合理的適応なのです。
アサガオなどの合弁花を見分ける基準とテスト対策
アサガオの合弁花冠に秘められた解剖学的な美しさと適応の知恵を理解したところで、ここからは視野をグッと広げて、私たちが日常で目にする身の回りのさまざまな植物たちとの比較へと歩みを進めてみましょう。
自然界を見渡してみると、「花びらがバラバラに見えるのに実は合弁花」という意外な植物や、逆に「花が丸ごとポトリと落ちるのに離弁花」という直感を欺くような植物が数多く息づいています。こうした紛らわしい植物たちを迷わず正確に見分けるための実践的な判定基準と、学校の定期テストや高校入試で確実に得点を積み上げるための受験戦略を、わかりやすく伝授していきますね。
花びらを引っ張って確かめる基本的な判別法
身近な公園やお庭の散歩道で気になる花を見かけたとき、「この花は合弁花なのかな、それとも離弁花なのかな?」と判断に迷う場面はよくありますよね。図鑑の専門的な解説文を読まずとも、現場で誰でも一瞬でその正体を見極められる、もっとも確実で原始的な観察テクニックが存在します。
それは、「花びらの先端を一箇所だけ指先やピンセットでそっとつまみ、外側に向かって軽く引っ張ってみる」という判別テストです。
※なお、美しく咲いている花を無理にちぎってしまうのは植物にとって大きなストレスとなりますので、観察を行う際は、すでに寿命を迎えて地面に落ちた花や、咲き終わって自然に脱落しかけている花がらを利用して試してみてくださいね。
引っ張ったときの挙動に見る2つの決定打
花びらをゆっくりと引っ張った際、手元に伝わってくる感触と周囲の器官の連動の仕方に、植物の結合構造がダイレクトに反映されます。
物理的な判定基準:
・合弁花の場合: 引っ張った花弁の動きに連動して、隣接する花弁や根元の筒状組織全体が「ズルズルッ」と一塊になって一緒に引っ張られます。さらに強く力を加えると、花弁が根元から綺麗に外れるのではなく、組織の途中からビリッと破れて裂けてしまいます。
・離弁花の場合: つまんだ花弁1枚だけが、根元の花床から「プチッ」と単独ですんなり分離して外れ、隣の花弁や周囲の組織はその場にまったく乱れず取り残されます。
この観察テストをアサガオで試してみるとどうなるでしょうか。朝顔の花びらのフチを少しつまんで引っ張ると、花冠全体が大きく歪んでついてきて、1枚だけをペラリと剥がし取ることは絶対にできませんよね。無理に引っ張れば、中肋(曜)の間にある薄膜組織が縦に無残に引き裂かれてしまいます。この「全体がひとつのシートとして連動する」という物理的な振る舞いこそが、細胞間が強固に癒合している合弁花を決定づける揺るぎない証拠です。
お庭の草花のお手入れや花がら摘みをする際に、指先の触感を通じてこの連動性を確かめてみるだけでも、「あ、この花は基部でしっかり繋がっているんだな」「こっちは完全に1枚ずつ独立しているな」と、生きた植物の解剖学をリアルに体感することができますよ。
離弁花に見えて合弁花であるタンポポの正体
中学理科の定期試験や高校入試問題において、出題者が受験生の盲点を突くために好んで仕掛けてくる最大のトラッププランツ、それが「タンポポ」と「ヒマワリ」に代表されるキク科の植物たちです。
春の野原に咲くタンポポの花をイメージしてみてください。鮮やかな黄色い細長い花びらが、中心から外側に向かって何十枚、何百枚と放射状にびっしりと広がっていますよね。この華やかな姿をパッと見ただけで、「花びらが細かく何十枚にも分かれて生えているんだから、どう見ても離弁花に決まっている!」と即答してバツをつけられた経験を持つ方は、後を絶ちません。
驚くべきことに、植物分類学における厳格な正解は、「タンポポは完璧な合弁花類である」というものです。一見すると究極の離弁花のようにも思えるタンポポが、なぜ合弁花に分類されるのでしょうか。
1輪の花に見える「巨大な花の都市」のカラクリ
この謎を解き明かす鍵は、私たちが普段「タンポポの1輪の花」と呼んでいるあの黄色い丸い塊の、驚くべき真の姿にあります。植物学的に言えば、あの丸い花全体は決して「1輪の花」ではありません。
虫眼鏡やルーペを使ってタンポポの花を限界まで拡大してみると、驚愕の事実が判明します。私たちが「花びら1枚」だと思い込んでいた黄色い帯状のパーツの根元をピンセットで慎重に引き抜いてみてください。その下部には、小さな筒状の根元があり、そこからくるりと二股に分かれた雌しべが伸び、筒の中には雄しべが収まり、さらに一番下には将来タネになる子房と、綿毛になる白い毛(冠毛:がくが変形したもの)が、すべて完璧に揃っています。
タンポポの黄色い花びらに見える1片は、花びらの一部などではなく、それ自体が独立した完全なひとつの花(小花:しょうか)なのです。タンポポは、100〜200個もの極小の花たちがひとつの平らな台座(花床)の上に密集し、あたかも全体でひとつの大きな花であるかのように擬態している「頭状花序(とうじょうかじょ)」という高度な集合体なのです。
そして、この引き抜いた1つの小花(舌状花:ぜつじょうか)の先端を、ルーペで注意深く観察してみてください。リボンのような黄色い花弁の先端に、微小なギザギザの山(歯状突起)が、規則正しく「5つ」並んでいるのが確認できます。
この5つのギザギザこそが、大昔の祖先が持っていた5枚の花弁の先端の名残なのです。つまりタンポポの舌状花は、本来筒状であった5枚の花弁が横に裂けて平たく開き、5枚が横一列に隙間なく癒合して一枚のリボン状になった、極めて特殊な「合弁花冠」なのです。
夏に大輪の花を咲かせるヒマワリも、コスモスも、キクも、すべてこれと全く同一の頭状花序システムを採用しています。外側の大きな花びらは舌状花、中心部の黒っぽい密集部分は小さな筒状花(これも5裂する合弁花)の集まりです。外見の錯覚に惑わされず、生物学的な「花の最小単位」を見極めることこそが、タンポポが合弁花であるという真実を掴む決定打となるのです。
先端が深く裂けても合弁花に属するツツジ
タンポポと並んで、学校の理科テストや野外観察会で学習者を大いに悩ませる代表格が、春の街路樹や公園の植え込みを鮮やかに染め上げる「ツツジ」です。
満開のツツジの花を正面から眺めてみると、優美に波打つ花びらが5枚、星型のように大きく綺麗に分かれて広がっているように見えます。子供の頃、この花びらの隙間に指を入れて遊んだ記憶がある方も多いはずです。「花びらの先端が完全に5枚に分かれているのだから、これは離弁花なんじゃないの?」と感じてしまうのは、ごく自然な直感と言えますよね。
しかし、ツツジの花を横から、あるいは斜め後ろから観察してみると、その直感は見事に覆されることになります。先端部分こそ大きく5つに深く裂けて広がっていますが(5深裂:ごしんれつ)、視線を下へと移して花冠の付け根のほうをたどっていくと、5つの裂片はすべて滑らかに合流し、太くしっかりとしたひとつの「頑丈な筒」を形成していることが一目瞭然です。
植物形態学における合弁花と離弁花の判定基準は、花びらの先端がどれほど深く裂けているかではなく、「花弁の基部(根元)が組織的に結合して一体化しているかどうか」の一点のみに集約されます。ツツジのように先端がどんなに深く5枚に分かれて見えても、根元に共通の筒状構造(花冠筒)が存在する以上、植物学上の分類は紛れもない「合弁花」となります。
昔、ツツジの花を摘んでお尻の部分から甘い蜜を吸った経験がある方もいらっしゃるのではないでしょうか。花首のところを指でつまんでそっと引っ張ると、花全体がスポッと王冠のような形のまま丸ごと抜けてきますよね。あれこそが、花冠の基部全体が完全にひとつに癒合している合弁花ならではの決定的な特徴です。
「先っぽがどんなに分かれていても、根元がくっついていれば合弁花」。この黄金ルールをしっかりと心に刻んでおけば、ツツジやサツキ、キキョウのように先端が深く切れ込んだ花に出会ったときでも、決して判断を誤ることはなくなりますよ。
丸ごと落ちるのに離弁花に分類されるツバキ
ツツジのパターンとは正反対のベクトルで、多くの植物愛好家や理科の学習者を深い混乱の渦へと叩き落とす自然界最大のトリックスター、それが冬から早春の庭園を気品高く彩る「ツバキ(椿)」です。
ツバキの散り際といえば、サクラのように花びらが1枚ずつハラハラと舞い落ちるのではなく、花冠全体の形を綺麗に保ったまま、ポトリと首から丸ごと地面に落下することで広く知られています。かつて江戸時代の武士たちが「首が落ちるようで縁起が悪い」と屋敷に植えるのを嫌ったという有名な逸話が残るほど、ツバキの落花様式は完璧な「一体落下」を示します。
「花全体がひとつの塊としてまとまって落ちるのだから、アサガオと全く同じ合弁花に決まっている!」と確信してしまうのも無理はありません。しかし、息を呑むような驚くべき事実をお伝えしなければなりません。植物分類学上、ツバキは合弁花ではなく、正真正銘の「離弁花類(ツバキ科)」に分類されるのです。
落下を演出する「雄しべの筒」という接着剤
「花が丸ごと落ちるのに、どうして離弁花なのか?」というパラドックスに、頭の中がパニックになってしまいそうですよね。この奇妙な現象の裏には、ツバキが独自に進化させた特殊な解剖学的構造が潜んでいます。
ツバキの花の中心部を覗き込んでみると、中央に林立する無数の黄色い雄しべ(雄ずい)が目を引きます。この雄しべたちの軸(花糸)の根元をピンセットで慎重に解剖してみると、なんと多数の雄しべの根元同士が組織的に癒合し、強固な「雄しべの筒(花糸筒)」を形成していることが分かります。
ツバキの花びらは、花弁同士が互いに結合しているわけでは決してありません。花弁同士は完全に独立した「離弁花」なのですが、それぞれ個別の花弁の付け根が、内側にある「雄しべの筒」の外壁に対して接着剤で貼り付けられたかのように強固に癒着しています。
花が寿命を迎えると、花床と雄しべの筒との間に離層が形成され、雄しべの筒が土台から外れてポトリと落下します。このとき、雄しべの筒の外側に貼り付いていた独立した花弁たちも、道連れになる形で一緒にくっついたまま地面へと落下するのです。これが、ツバキが丸ごと落ちる現象の真実のカラクリです。
この事実を証明する実験はとても簡単です。地面に落ちたツバキの花を拾い上げ、ピンセットを使って花弁の付け根を雄しべの筒から外側へとそっと剥がしてみてください。アサガオのように組織が破れることは一切なく、花弁が1枚、また1枚と、見事なまでに傷ひとつなくペラペラと綺麗に剥がれ落ちていきます。
なお、同じツバキ科ツバキ属でありながら、秋から冬にかけて咲くサザンカ(山茶花)は、花弁の根元が雄しべ筒にそれほど強固に接着していないため、風が吹くとサクラのように花びらが1枚ずつハラハラと散っていきます。「散り方の外見」だけに惑わされてはいけないという、植物観察の奥深さを教えてくれる最高の教材ですね。
| 植物名 | 外見上の印象 | 植物学上の真の分類 | 誤認が生じる解剖学的・形態学的理由 |
|---|---|---|---|
| アサガオ | 切れ目のない1枚の漏斗状 | 合弁花 | 発生初期に5枚の花弁原基が側方合着。表面に走る5本の曜が5数性を証明 |
| タンポポ | 多数の花びらが独立して放射状に並ぶ | 合弁花 | 1輪に見える花は無数の「小花(舌状花)」の集合体。小花の先端の5歯が合弁の証 |
| ツツジ | 先端が5枚に深く分かれて開く | 合弁花 | 先端は深く5裂しているが、花冠の根元(花筒部)が完全に筒状に融合している |
| ツバキ | 花冠全体がまとまって首からポトリと落下 | 離弁花 | 花弁同士は合着しておらず独立。癒合した雄しべ筒の外壁に付着して道連れで落下 |
理科のテストや受験で頻出する問題の傾向
ここまで掘り下げてきた植物形態学の知識は、中学校の定期テストをはじめ、公立・私立高校入試、さらには大学入学共通テストに至るまで、理科の生物分野において極めて頻出度の高い超重要論点です。出題者の意図を先回りして把握できるよう、代表的な出題パターンと攻略の勘所を整理しておきましょう。
パターン1:アサガオの花弁数を問う直感の裏返し問題
もっとも古典的でありながら、毎年多くの受験生が引っかかるのが「アサガオの花弁の枚数を数字で答えよ」というストレートな設問です。観察が浅い生徒は見た目の印象のまま「1枚」と記入してしまい、手痛い減点を食らいます。正解は当然「5枚」です。
さらに公立高校の記述問題や私立上位校の試験では、一歩進んで次のような論述問題が課されます。
頻出論述例:
「アサガオの花冠は切れ目のない漏斗状をしているが、花弁が5枚であると判断できる根拠を、花冠以外の花器官の特徴に触れて簡潔に説明しなさい。」
模範解答の骨子:
「がく片が5枚存在し、雄しべも5本存在するというように、花の各器官の配置に五数性の一致が見られるため。(または、花冠表面に花弁の中肋にあたる曜が5本観察できるため。)」
単なる暗記ではなく、複数の器官の数的一致(五数性)を論理的な証拠として提示できるかどうかが、高得点を獲得するための分水嶺となります。
パターン2:分類群の選別と単子葉類トラップ
「次の植物の中から、合弁花類に属するものをすべて選び、記号で答えよ」というグループ分け問題も定番中の定番です。選択肢には高確率で以下のようなトラップが配置されます。
- トラップA(外見の錯覚): タンポポ、ヒマワリ(離弁花に見えるが合弁花類)
- トラップB(散り方の錯覚): ツバキ(まとまって落ちるが離弁花類)
- トラップC(分類体系の除外): ユリ、ツユクサ、チューリップ(そもそも単子葉類なので合弁・離弁の区別がない)
問題文を読んだ瞬間、まず単子葉類(ユリなど)をシャットアウトし、次にキク科(タンポポなど)を合弁花へと振り分け、ツバキを離弁花へ戻すという冷静なフィルタリングができるようになれば、この手の問題で失点することは二度となくなります。
パターン3:子房の断面図と胚珠の数
アサガオの雌しべの基部にある子房を水平に切断した模式図が提示され、内部の構造を答えさせる図節問題も頻出です。3つの部屋(子房室)に区画されていること、そしてそれぞれの部屋に2個ずつ、合計6個の胚珠が収まっている構造を正確に読み解かせる問題です。
秋にアサガオの実を収穫した際、ひとつの実からだいたい6個のタネが出てくるという生活体験と、解剖図の3室6胚珠という知識が結びついているかを試す良問として、教育現場で非常に好まれる出題形式となっています。
合弁花類と離弁花類を覚えるおすすめの語呂合わせ
植物の分類基準や解剖学的なメカニズムが完璧に理解できたとしても、テスト本番の極限の緊張感のなかでは、「あれっ、ヒマワリってどっちだったっけ……」「エンドウはどっちだっけ……」と一瞬の迷いが生じてしまうこともありますよね。
そんなピンチを救ってくれるのが、先人たちが生み出し、代々の受験生に受け継がれてきた実践的な「語呂合わせ」のテクニックです。中学理科や高校入試に登場する植物の種類は限られていますので、合弁花類の代表種を語呂合わせで完全に脳内に定着させておく戦略がもっとも有効です。
合弁花類を仕留める最強の語呂合わせ
「ごめん! 朝つついた 短気な ヒマ人」
・ご(めん):合弁花類(ごうべんかるい)
・朝:アサガオ
・つつ(いた):ツツジ
・短気(たんき):タンポポ
・ヒマ人:ヒマワリ
「朝早く、短気なヒマな人をツンツンとつついて怒られてしまい、ごめん!と謝っている」というコミカルなシチュエーションを頭の中にカラー映像で思い浮かべてみてください。このインパクト抜群のワンフレーズさえ覚えておけば、入試で問われる合弁花の主要メンバーを一網打尽に思い出すことができます。
キク科の「キク」までしっかりと網羅しておきたい方には、もうひとつの定番フレーズもおすすめです。
「朝 来た ひつじ」
・朝:アサガオ
・来(た):キク
・ひ:ヒマワリ(またはタンポポの「たん」とセットで)
・つじ:ツツジ
朝、庭にモコモコした可愛いヒツジが遊びに来たイメージですね。すっきり短くて暗記しやすいのが魅力です。
離弁花類を固める語呂合わせ
合弁花類を覚えたら、対となる代表的な離弁花類もセットで頭に入れて、二重の防御壁を築いておきましょう。
「リベンジ! アブない サエちゃん」
・リベン(ジ):離弁花類(りべんかるい)
・アブ(ない):アブラナ(菜の花)
・サ:サクラ
・エ(ちゃん):エンドウ
危険な目に遭ったサエちゃんが、悔しさをバネに見事リベンジを果たすというドラマ仕立ての語呂合わせです。春の離弁花トリオ(アブラナ、サクラ、エンドウ)が完璧にインプットできますね。
試験会場での実践ステップ:
1. 問題文で植物名を見たら、まず「単子葉類(ユリ、イネ、トウモロコシ等)」を弾く。
2. 残った双子葉類の中から、「ごめん!朝つついた短気なヒマ人」で合弁花を特定する。
3. そこに当てはまらない双子葉類(サクラ、エンドウ、アブラナ等)を離弁花と判定する。
この3ステップの思考ルーチンを確立しておけば、どんな難問やひっかけ問題が立ちはだかっても、制限時間内に落ち着いて100%の正答を導き出すことができますよ。
変化朝顔に見られる花びらの多様な形態変異
アサガオの花の基本構造が「5枚の花弁が癒合した漏斗状の合弁花冠」であることは、ここまでに深く理解していただけたかと思います。しかし、日本の豊かな園芸文化の歴史を紐解くと、この「合弁花」という大原則そのものを劇的に打ち破り、信じられないような奇跡の変容を遂げたアサガオたちが存在します。それが、江戸時代の園芸家たちが心血を注いで生み出した「変化朝顔(へんかあさがお)」の世界です。
文化・文政期(1804〜1830年)を中心とする江戸時代中後期、町人や武士、旗本たちの間で、突然変異によって奇怪な花や葉をつけるアサガオを蒐集・交配・鑑賞する空前のブームが巻き起こりました。当時の愛好家たちは、メンデルの遺伝の法則すら知られていなかった時代に、隠れた劣性遺伝子を巧みに掛け合わせ、現代の植物学者をも唸らせる驚異的な形態変異系統を確立したのです。
合弁花の枠組みを超越した変異のバリエーション
変化朝顔の古文書(『朝顔三十六花撰』など)に描かれた花々を眺めると、これが本当にあのアサガオなのかと目を疑うような姿が次々と現れます。
- 采咲き(さいざき)・切れ咲き: 花弁同士が側方で癒合する発生シグナルが遺伝子変異によって完全に解除され、花冠が基部まで深く細かく引き裂かれ、まるでナデシコやカーネーション、あるいは完全な離弁花のように細長い花びらがバラバラに咲き乱れる系統です。
- 牡丹咲き(ぼたんざき): 花の形態形成を司るホメオティック遺伝子の変異により、雄しべや雌しべが花弁へと変態(弁化)し、何十枚もの花びらが幾重にも重なり合って咲く絢爛豪華な完全八重咲きです。
- 台咲き(だいざき): 花冠の筒の中から、さらにもう一段、小型の花冠が立ち上がって二重構造を形成する、極めて立体的な変異です。
- 多曜咲き(洲浜変異など): 大輪朝顔などに広く見られる変異で、通常は5本であるはずの曜(主脈)の数が、6本、7本、8本、多いものでは9本以上へと増加します。花弁のもとになる原基の数自体が増加しており、これに同調してがく片の枚数や雄しべの本数も厳密に増加するという、器官形成のシンクロ現象が観察されます。
現代の分子生物学や植物遺伝学の研究において、アサガオは花の形態形成機構を解明するための世界的な「モデル植物」として極めて高い評価を受けています。例えば、つぼみの内部において狭小な空間を漏斗状花冠がスムーズに伸びる際、花弁表面の「分泌腺毛」から分泌される粘液が潤滑油として機能し、花弁同士の摩擦を軽減しているという力学的な仕組みなど、最先端の学術研究が今なお活発に進められています(出典:大学共同利用機関法人 自然科学研究機構 基礎生物学研究所『アサガオの花弁がスムーズに展開する仕組みを解明』)。
江戸の愛好家たちが「奇想天外な美」を求めて選抜した変異系統が、200年の時を超えて現代の植物発生遺伝学の最前線を切り拓く扉になっている――。そう考えると、アサガオの合弁花冠に秘められた可塑性と生命の奥深さに、言葉にできない知的なロマンを感じずにはいられませんね。
アサガオの合弁花が持つ特徴と分類の総まとめ
ここまで、アサガオという身近な草花を入り口として、植物分類学の基礎体系、花冠の発生メカニズム、解剖学的な証拠、さらには他種との識別法や文化史に至るまで、多角的なアプローチでじっくりと探求してきました。
最後に、この記事で学んできた膨大で濃密な知識のエッセンスを、頭の中へ美しく結晶化させるための総総括マップとして、一覧表に整理してお届けします。
| 分析視点・テーマ | アサガオの特性と結論 | 背景にある植物形態学的・進化学的根拠 |
|---|---|---|
| 植物の体系的位置 | 被子植物 > 双子葉類 > 合弁花類 | 子葉2枚、網状脈、主根側根系、維管束環状配列という双子葉類の診断基準を完備 |
| 単子葉類との関係 | 合弁・離弁の区別は単子葉類に適用外 | 単子葉類は花弁とがくが未分化な同花被花(テパル)であり、比較の土俵が異なる |
| 花弁の枚数定義 | 外見は1枚だが「5枚の花弁が合着」 | 発生初期に5個の花弁原基が独立して生じた後、側方組織が二次的に癒合して伸長 |
| 肉眼で確認できる証拠 | 花冠表面を放射状に走る5本の「曜」 | 曜は独立していた花弁の中肋にあたる主脈。花冠のフチにも五角形の名残 |
| 花器官全体の幾何学 | 徹底した「五数性」(K5 C(5) A5) | がく片5枚、花弁5枚(合生)、雄しべ5本が同心円上に厳密に同数配置されている |
| 雌しべ内部の構造 | 3心皮合生の上位子房(3室6胚珠) | 内部が3つの部屋に仕切られ、各室2個ずつ胚珠を内包。成熟時に約6個の種子を形成 |
| 落花の挙動と離層 | 花冠全体がまとまって凋落 | 花弁同士が細胞レベルで結合しているため個別分離せず、花冠筒ごと落下する |
| 送粉と適応の戦略 | 昆虫の選好誘導 + 自家受粉 | 蜜腺へのアクセスを制限して花粉効率を高めつつ、早朝の雄しべ伸長で確実に受粉 |
| 誤認しやすい植物 | タンポポ(合弁)、ツツジ(合弁)、ツバキ(離弁) | タンポポは頭状花序、ツツジは基部結合、ツバキは雄しべ筒への付着という構造差 |
夏の早朝、ベランダやお庭で何気なく咲いているアサガオの姿には、気の遠くなるような進化の歴史と、自然界が紡ぎ出した精緻を極める力学デザインが息づいています。
学校の定期試験や受験対策の知識として整理しておくことはもちろんのこと、今度アサガオの花に出会ったときは、ぜひその花冠をそっと覗き込み、表面を走る5本の曜や、花を支える5枚のがく片、内部で寄り添う5本の雄しべたちを、あなた自身の目で確かめてみてください。
「自然は細部に宿る」という言葉の通り、ひとつの小さな花の中に秘められた壮大で整然たる生命の秩序に触れる喜びを、この記事を通じて少しでも深く味わっていただけたなら、ガーデニングと植物を心から愛する私にとって、これ以上の幸せはありません。
植物の分類体系や系統関係に関する学説は、近年の分子系統樹(APG分類体系など)の研究進展や文部科学省の学習指導要領改訂に伴い、学校教科書での扱いを含めて細かな記述方針が随時更新される場合があります。最新の公式な学習指導要領や出題基準については文部科学省や各教育委員会の公式サイトをご確認ください。また、園芸栽培における病害虫防除や薬剤使用等の安全管理につきましては、製品の公式使用説明書を確認し、最終的な判断は専門の指導員や農薬取扱業者にご相談くださいね。
この記事の要点まとめ
- アサガオは被子植物の双子葉類に属するナス目ヒルガオ科の一年生草本である
- 子葉が2枚で葉脈が網状脈で根系が主根と側根からなるため明確に双子葉類に分類される
- 合弁花および離弁花という分類区分は双子葉類にのみ適用され単子葉類には適用されない
- 単子葉類はがくと花弁が未分化な同花被花を持つため合弁花や離弁花の概念の対象外となる
- アサガオの花冠は発生初期に独立した5つの花弁原基が側方で合着した5枚の構造である
- 花冠表面に星型に放射状に走る5本の曜は各花弁の中肋にあたる主脈組織の痕跡である
- がく片5枚と雄しべ5本という五数性の厳密な一致が5枚の花弁の結合を解剖学的に証明する
- アサガオの花式はK5 C(5) A5 G(3)で表され雌しべは3心皮からなる上位子房である
- 離弁花が1枚ずつ散るのに対しアサガオは花冠全体が一体のまま萎縮または凋落する
- 合弁花冠の漏斗状構造は蜜への経路を制限し特定の送粉昆虫への受粉効率を高める適応である
- 早朝の開花運動時に花糸が急速に伸長して葯が柱頭を擦過することで確実に自家受粉する
- 花びらをつまんで引いた際に全体が連動して動くかどうかで合弁花を物理的に判別できる
- タンポポやヒマワリは無数の小花が集まった頭状花序であり個々の小花は合弁花である
- ツツジは花冠の先端が深く5裂していても基部の花筒部が合着しているため合弁花である
- ツバキは雄しべ筒に花弁が付着して丸ごと落下するが花弁同士は組織的に離生した離弁花である
- 合弁花類は語呂合わせを活用して代表種を記憶し残りの双子葉類を離弁花と判別する