




こんにちは。My Garden 編集部です。
初夏のベランダやお庭を爽やかに彩ってくれるアサガオは、日本の夏を象徴するお花として古くから親しまれていますよね。小学校の理科の授業で種をまいて育てたり、夏休みに毎朝観察日記をつけたりした思い出がある方もきっと多いのではないでしょうか。
でも、いざお子さんからアサガオは何類なのとお勉強の質問をされたり、ご自身でお庭の植物を整理したりするときに、ふと疑問に思うことはありませんか。小学校や中学校の理科で習う植物のグループ分けではどこに当てはまるのか、双子葉類なのか単子葉類なのか、あるいは合弁花類なのか離弁花類なのか、意外とパッと正確に答えるのは難しかったりしますよね。
さらに園芸を楽しんでいると、種子植物としての特徴だけでなく、一年草なのか多年草なのかという生活環の違いや、つる性植物としての巻き方の向き、さらには日長に反応して花を咲かせる短日植物としての性質など、生態面での分類も気になってくるかなと思います。また、アサガオによく似たヒルガオやヨルガオ、名前に顔がつくけれど実は全く違うユウガオなど、近縁種との見分け方に頭を悩ませている方もいらっしゃるかもしれません。
この記事では、植物が大好きな私たちが、学校理科で問われる解剖学的な分類基準から、ガーデニングで役立つ生態学的な特徴、さらには分子系統学に基づく最新の分類や江戸時代の奥深い歴史まで、分かりやすく丁寧に紐解いていきます。理科のテスト対策や中学受験の基礎固めをしたい方はもちろん、家庭菜園やお庭づくりでアサガオをもっと上手に育てたいと考えている方にとっても、知っておくと植物観察が何倍も楽しくなる情報が満載です。ぜひ最後までゆったりと楽しんで読んでみてくださいね。
- 理科教育における被子植物や双子葉類および合弁花類の基準と見分け方
- 一年草やつる性植物および短日植物といったアサガオの生態的特徴
- ヒルガオやヨルガオに加えてウリ科ユウガオなど近縁種との明確な違い
- 薬用植物としてのルーツや江戸時代に発展した変化朝顔の遺伝の面白さ
アサガオは何類かを理科の分類と特徴から解説
学校の理科の授業や試験問題において、アサガオは植物の身体のつくりや増え方を学ぶための基準種として本当によく登場しますよね。ここでは、胚珠や子葉、花弁の結合の仕方といった形態的な基準をもとに、アサガオが学術的にどのグループに分類されるのかをステップを踏んで詳しく見ていきましょう。
胚珠が子房に包まれた被子植物の特徴
アサガオが植物学的にどのグループに属しているのかを体系的に理解しようとするとき、まず土台となるのが種子を形成して世代交代を行う種子植物であるという事実ですね。そして、その広大な種子植物の領域の中で、胚珠を包み込む保護組織の有無に注目したとき、アサガオは明確に被子植物(ひししょくぶつ)へと分類されます。
種子植物の世界は、大きく「裸子植物」と「被子植物」の二大勢力に分かれていますよね。マツの球果(松ぼっくり)の隙間を覗き込んだり、イチョウの枝先を観察したりすると分かりますが、裸子植物では将来タネになる「胚珠(はいしゅ)」組織が外界の空気に直接触れる形でむき出しになっています。これに対して、アサガオをはじめとする被子植物は、雌しべの根元に「子房(しぼう)」と呼ばれる中空のフラスコのような袋状器官を発達させ、その堅牢な内壁の奥深くに胚珠を格納して大切に保護しているのです。
アサガオの開花期に花冠の内部を縦にそっと切り開いてみると、中心にすっと伸びる白い雌しべの最下部が、真珠のように白く丸っこく膨らんでいる様子が観察できます。この膨らみこそがまさに子房です。外敵となる昆虫の食害や、夏の強い紫外線、乾燥した風から胚珠を守るこの構造は、植物が陸上生活において受精の成功率を極限まで高めるために獲得した、極めて高度な進化の結晶と言えますね。
受粉から結実へ至る解剖学的プロセス
アサガオの花粉が雌しべの先端(柱頭)に付着すると、花粉は速やかに「花粉管」と呼ばれる微小な管を伸ばし始めます。この花粉管は、雌しべの花柱という細長い組織の内部を通り抜け、子房の壁を貫いて、奥底に鎮座する胚珠の「珠孔」を目指して真っ直ぐに進んでいきます。花粉管の中を通ってきた精細胞が胚珠内の卵細胞と出会う「重複受精」を果たすと、胚珠は急速に細胞分裂を繰り返して「種子」へと成熟を開始します。
同時に、胚珠を外側から包み込んでいた子房壁もまた、果皮へと肥大・硬化していきます。受粉から約3週間から1ヶ月ほど経過すると、緑色だった子房はカサカサとした茶褐色の薄い殻(朔果:さくか)へと変化します。この朔果の内部は通常3つの部屋(室)に分かれており、それぞれの部屋の中に黒くて硬い種子が2粒ずつ、合計で最大6粒の充実したタネが育ちます。完熟すると子房の殻が規則正しく裂開し、散布される仕組みになっているわけです。
被子植物と裸子植物の決定的な構造差
理科の勉強や受験指導の現場でも頻出となる、被子植物と裸子植物の対比ポイントを以下の比較表にまとめました。スマートフォンから閲覧される際もレイアウトが崩れないよう、横スクロールに対応させています。
| 分類群 | 胚珠の配置 | 子房の有無 | 受粉後の果実形成 | 受粉様式と送粉者 | 代表的な植物種 |
|---|---|---|---|---|---|
| 被子植物 (アサガオなど) |
子房の内部に完全に包まれ保護されている | 明確に発達した子房組織を持つ | 子房が発達して果実となり種子を包む | 虫媒花、鳥媒花、風媒花など多様な適応 | アサガオ、サクラ、ヒマワリ、イネ、ユリ |
| 裸子植物 (マツなど) |
鱗片(りんぺん)の基部に直接露出している | 子房を持たない(胚珠がむき出し) | 子房がないため真正の果実は形成されない | 主に風によって花粉を飛ばす風媒花が中心 | アカマツ、クロマツ、スギ、イチョウ、ソテツ |
お庭でアサガオを育てていると、しぼんだ花冠がポロリと落下したあとの萼(がく)の中央に、瑞々しい緑色の子房が誇らしげに残されているのを目にする機会が多いですよね。あの小さな緑の球体こそ、アサガオが被子植物であることの確固たる証拠です。日常のちょっとしたガーデニング作業の中にも、数億年に及ぶ植物の進化の物語がしっかりと息づいているのを感じ取ることができますね。
2枚の子葉を展開する双子葉類の性質
被子植物という広大なグループの中で、次に展開される重要な分岐点が、発芽の瞬間に最初に地上へと姿を現す葉、すなわち「子葉(しよう)」の数に基づいた分類です。アサガオのタネを土に埋めて適度な水やりを続けると、初夏の地温上昇に伴って硬い種皮を破り、力強い芽吹きが始まります。このとき土を持ち上げてパッと左右に広がる最初の葉は、ぴったり2枚対になって展開します。この形態的特徴から、アサガオは双子葉類(そうしようるい)に分類されます。
小学校の低学年で行うアサガオの観察記録を思い出してみてください。誰もが一番最初に画用紙へ描くのが、あの独特の形をした2枚の子葉ですよね。アサガオの子葉は、丸っこい団扇のようでありながら、先端中央がキュッと深く切れ込み、まるで蝶々が羽を休めているかのような特徴的なシルエットをしています。この子葉はただの飾りではなく、種子内部の胚乳組織から受け継いだ脂質や糖分などの豊富な初期栄養を活用しながら、速やかに葉緑素を合成して初期の光合成を担う生命維持装置そのものなのです。
アサガオの種皮は極めて硬く、そのまま播種すると吸水に長時間を要することがあります。園芸店等で流通している種子は機械的に表皮にスリットを入れたネーキッド処理種子が多いですが、ご自身で秋に採取した種子を翌春にまく際は、発芽点(へその部分)を避け、丸みを帯びた背中側の種皮を爪切りや紙やすりでコンマ数ミリほど削ってから一晩ぬるま湯に浸しておくと、吸水が均一に進み、見事な2枚の子葉が揃って元気に顔を出してくれますよ。
子葉の枚数が決定づける体制構築の青写真
植物生理学や形態学の観点から見て極めて興味深いのは、この「子葉が2枚(双子葉類)か、それとも1枚(単子葉類)か」という初期発生の相違が、単なる芽生えの形の違いにとどまらず、植物体全体の骨格設計に不可逆的な方向性を与えているという点です。単子葉類(イネ、ムギ、トウモロコシ、ユリなど)が、細長い葉と平行な葉脈、ひげ根、散在する維管束という独自のボディプランを進化させたのに対し、双子葉類であるアサガオは、これらとは全く異なる幾何学的な構造美を一貫して体現しています。
胚発生と子葉の展開メカニズム
アサガオの種子を半分に割ってみると、内部には折りたたまれた複雑な構造の胚がぎっしりと詰まっています。この胚の中には、すでに2枚の子葉が幾重にもコンパクトにパッキングされており、発芽のシグナル(水分、酸素、温度)を受け取ると同時に、幼軸が急速に伸長して子葉を地上へと押し出します。子葉がしっかりと光を受け止めて栄養を生産し始めることで、その中心部にある成長点から、いよいよアサガオ特有の本葉(三裂葉)が順次形成されていくサイクルへと移行するわけですね。
根や葉脈と茎の維管束に見られる共通点
アサガオが双子葉類であるという事実は、植物体を構成する主要な三大器官である「葉」「根」「茎」の解剖学的構造を詳細に観察することによって、さらに強固に裏付けられます。学校の理科教育や各種学力試験においても、これら三つの器官の連動性は最重要項目として扱われていますね。
まず、成体の葉の表面に浮き出ているパイプラインである「葉脈(ようみゃく)」のパターンから見ていきましょう。アサガオの本葉を光に透かして観察すると、葉柄から中央を貫く太い主脈が走り、そこから左右対称に規則正しく側脈が分岐し、さらにそれらの間を細かな毛細血管のような細脈が無数に連絡し合って、精緻な網目模様を描いているのが分かります。このような葉脈の走行形式を網状脈(もうじょうみゃく)と呼びます。イネやススキに見られる、葉の基部から先端に向かって平行に筋が通る「平行脈」とは極めて対照的な幾何学パターンですね。
続いて、土壌中に展開される「根系(こんけい)」の構造です。アサガオの苗をポットから慎重に抜き出して根元の土を優しく洗い流すと、中央にまっすぐ下方へと力強く突き進む太い中心軸が存在することが確認できます。これを主根(しゅこん)と呼びます。そして、この主根の側面から、土壌中の水分やミネラルを広範囲から吸収するために水平・放射状に細かく枝分かれして伸びる根が側根(そっこん)です。トウモロコシやタマネギのように、茎の基部から太さの均一な多数の根が束になって生える「ひげ根」とは根本的に異なる支持・吸収構造を確立しています。
そして最後に、茎の横断面を光学顕微鏡で覗いたときに見られる「維管束(いかんそく)」の配列パターンです。維管束とは、根から吸い上げた水分や無機養分を地上部へと送り届ける「道管(木部)」と、葉の光合成によって生み出されたスクロースなどの同化産物を植物体各所へと輸送する「師管(篩部)」が束になった複合組織ですね。アサガオの茎の横断面では、これら道管と師管の間に細胞分裂を盛んに行う帯状の分裂組織である「形成層」が存在し、維管束全体が茎の中心を取り囲むように、綺麗な同心円状、すなわち輪状に整然と配列しています。
双子葉類の構造的三位一体
アサガオの身体は、「葉=網状脈」「根=主根と側根」「茎=維管束の輪状配列(形成層あり)」という、双子葉類の基準形態を過不足なく完璧に備えています。この三つの特徴は、植物が効率的に水分と養分を循環させながら立体的な成長を遂げるための、力学的一貫性を持った構造なのです。
単子葉類と双子葉類の解剖学的比較
読者の皆様が頭の中で双方の構造差を立体的にイメージできるよう、両者の解剖学的相違点を詳細に比較したマトリクスを作成しました。
| 比較器官 | 双子葉類(アサガオ基準) | 単子葉類(イネ・ユリ基準) | 機能的・生態的な意義の差異 |
|---|---|---|---|
| 子葉の数 | 2枚(左右対称に展開) | 1枚(鞘状または針状) | 発芽初期の光合成面積と貯蔵養分の配分戦略の違い |
| 葉脈の構造 | 網状脈(主脈から側脈が網目状に分岐) | 平行脈(基部から先端へ平行走行) | 網状脈は葉身全体の力学的強度を高め、広葉の展開を支持 |
| 根系の形態 | 主根と側根(中心軸が明確に存在) | ひげ根(茎基部から多数が放射状に伸長) | 主根系は地下深くへの直入と強固なアンカー効果を発揮 |
| 茎の維管束 | 輪状配列(同心円状・形成層を挟む) | 散在配列(基本組織中に不規則に分布) | 輪状配列は二次肥大成長(茎を太くすること)を構造的に可能にする |
| 花弁の基本数 | 4または5の倍数(アサガオは5基調) | 3の倍数が基本 | 送粉昆虫のサイズや形態への進化的適応の差異 |
このように細部まで見ていくと、アサガオという身近な植物が、いかに教科書通りの美しい双子葉類の基本構造を忠実に体現しているかがよく分かりますよね。お庭での摘心や誘引の際にも、茎の輪状維管束の走行を意識しながら優しく触れてあげると、植物への愛着もより一層深まるかなと思います。
花弁が基部で一体化した合弁花類の構造
さて、ここからはいよいよ検索キーワード「アサガオ 何類」の中核を成す、もっとも重要で試験でも真っ先に問われる分類階層へと足を踏み入れていきましょう。被子植物の双子葉類は、花を構成する花弁(花びら)がそれぞれ完全に独立して離れているか、それとも互いに融合して一体化しているかによって、「離弁花類(りべんかるい)」と「合弁花類(ごうべんかるい)」の二大グループに区分されます。結論から明確に申し上げますと、アサガオは間違いなく合弁花類の代表選手です。
早朝の澄んだ空気の中で開くアサガオの花を正面から見つめると、それはまるで管楽器のラッパやメガホン、あるいは実験器具の漏斗(ろうと)のような、滑らかで継ぎ目のない一体的な円錐構造を描いていますよね。花冠の縁(へり)の部分を指で丁寧になぞってみると、わずかに5箇所の浅い切れ込みや角(稜)が認められるものの、花弁組織そのものは基部に向かって完全に細胞レベルで癒合しており、物理的に分離していません。
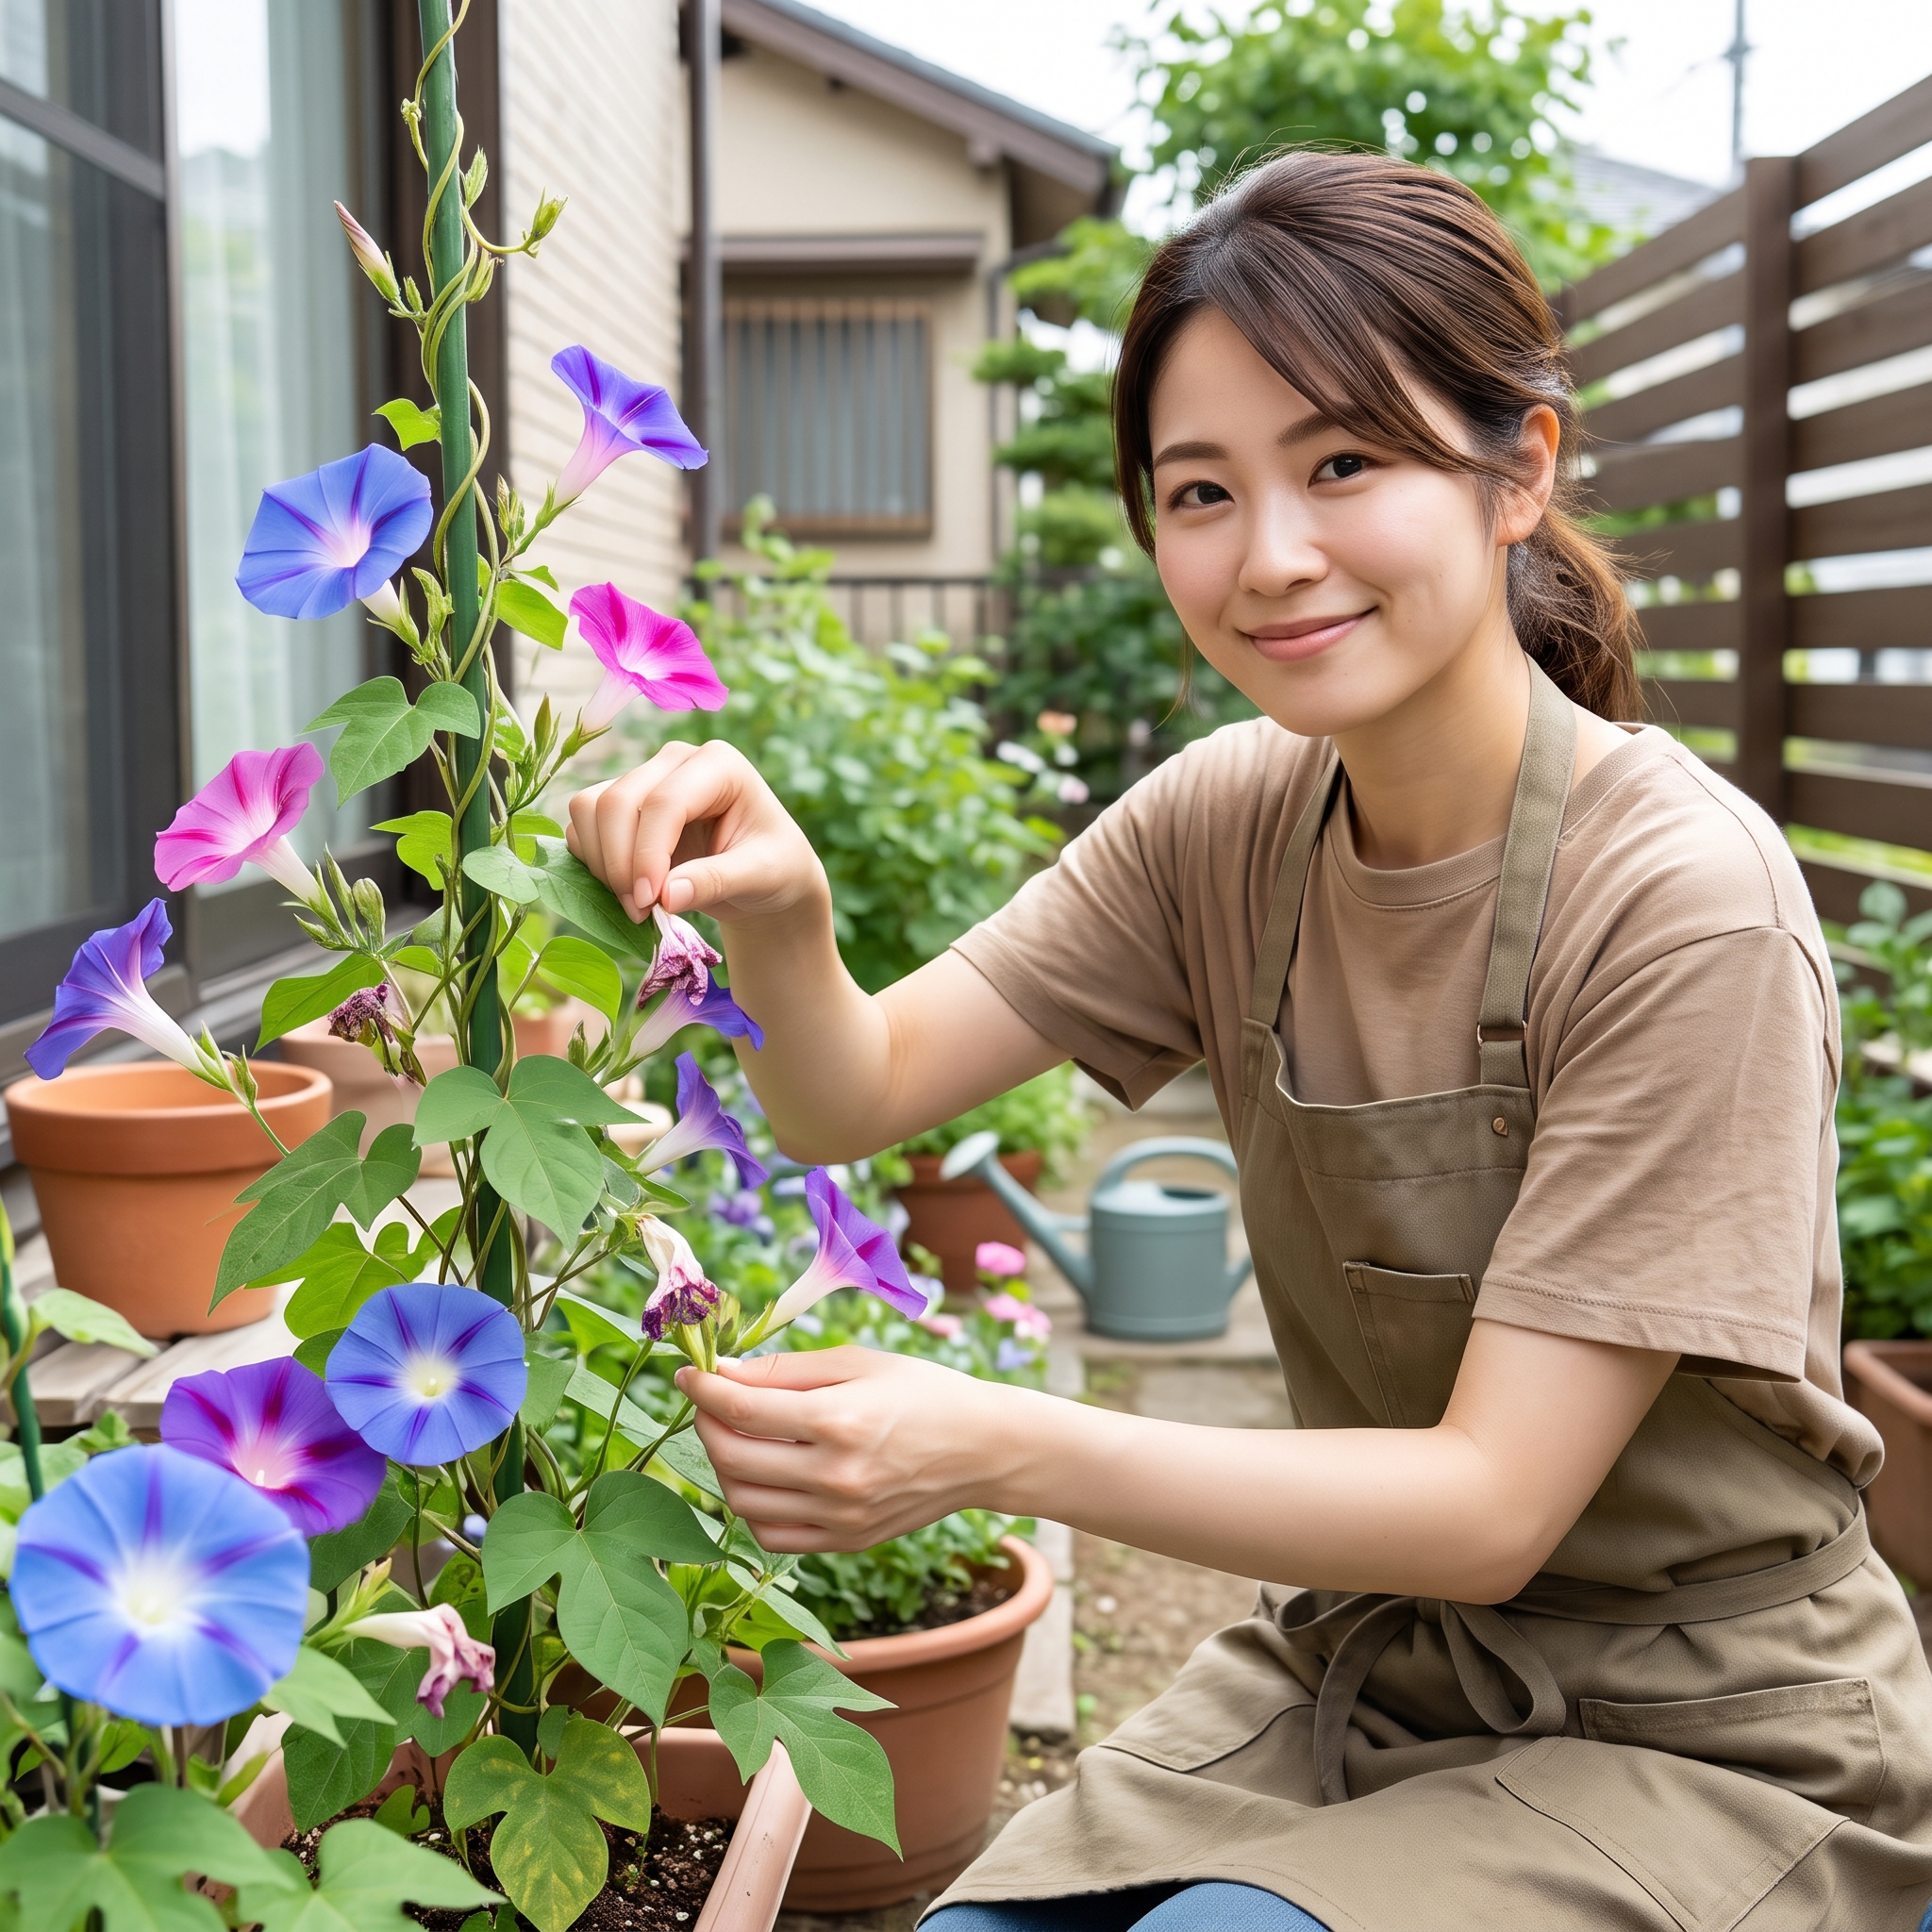
ガーデニングの日常作業である花がら摘みをするとき、咲き終わってしおれたアサガオの花を萼から引き抜いてみてください。サクラやウメ、バラのように、風や接触によって花びらが1枚1枚ヒラヒラとバラバラになって散ることは決してありませんよね。アサガオの花は、筒状になった花冠全体が、ひとまとまりのユニットとしてスポッと綺麗に抜け落ちるはずです。この「花弁の基部が合着して1つの構造体を形成している」という形態的特徴こそが、合弁花類を定義する決定的な基準なのです。
5枚の花弁が融合した進化的背景と機能美
植物形態学の観点から解剖してみると、アサガオの花冠は突如として1枚の布のように生まれたわけではありません。進化の歴史において、祖先種が持っていた独立した5枚の花弁が、特定の送粉昆虫を効率よく誘導するために側方癒合(側面の細胞同士が接着・融合すること)を遂げた結果として成立した器官です。アサガオの花を裏側から透かして見ると、5本の太い筋(花冠肋:かかんろく)が放射状に走っているのが見えますが、これこそがかつて独立していた5枚の花弁の中心軸であった名残なのです。
この合弁構造は、アサガオにとって極めて高度な受粉効率化の武器となっています。花冠の筒の奥深くを観察すると、5本の雄しべの花糸(根元の柄)が、花冠の筒の内壁に直接合着しているのが確認できます。筒の最も深い底の部分には蜜腺が配置されており、アサガオの受粉を媒介するマルハナバチやスズメガなどの昆虫が蜜を吸おうと頭を突っ込むと、細い筒構造によって昆虫の侵入経路が強制的に一方向に限定されます。その結果、昆虫の頭部や背中に雄しべの花粉が確実に擦り付けられ、同時に雌しべの柱頭にも接触するという、極めて確実性の高い受粉の自動化システムが完成しているわけですね。
理科テストで頻出する合弁花類の見分け方
小学校や中学校の定期テスト、さらには高校入試や難関中学入試の理科において、アサガオを含む「合弁花類と離弁花類の見分け」は、配点比率の高い頻出分野として知られています。しかし、この分野は単にアサガオの形を覚えているだけでは満点を取ることが難しく、出題者が仕掛ける巧妙な引っかけ問題を回避するための確固たる鑑識眼が求められます。
試験において受験生が最も失点しやすい最大の罠が、タンポポ、ヒマワリ、コスモス、ガーベラといった「キク科植物」の分類判定です。これらの花をパッと肉眼で観察したとき、中心から外側に向かって細長い花びらが何十枚も放射状に並んでいるように見えますよね。そのため、多くの子どもたちが「花びらがたくさん散らばっているから離弁花類だろう」と直感的に判断してしまい、誤答の山を築いてしまうのです。
しかし、植物学的な真実は全く異なります。キク科植物の見かけ上の「1輪の花」は、実は微小な花が数十〜数百個も高密度に集合した「頭状花序(とうじょうかじょ)」と呼ばれる花の集合体です。花びらのように見えている周囲のペラペラとした1枚(舌状花)をピンセットで慎重に引き抜いてルーペで観察してみると、先端に5つのギザギザがあり、基部は細い筒状にしっかりと合着しています。つまり、あれは1枚の花弁ではなく、それ自体が完成された「1個の合弁花」なのです。したがって、タンポポもヒマワリも、アサガオと全く同じ合弁花類に分類されます。
試験で絶対に間違えてはいけない識別トラップ
「見た目が1枚ずつ散るように見えるキク科(タンポポ、ヒマワリ、キク、コスモス)は、例外なくすべて合弁花類である」という事実は、入試理科の鉄則中の鉄則です。逆に、花びらが根元から綺麗に1枚ずつ離れてハラハラと散るサクラ、アブラナ、エンドウ、インゲンマメなどは離弁花類に属します。この対比は必ず頭に叩き込んでおきましょう。
入試・定期テスト対策用:植物分類マスターテーブル
テストに出題される主要な植物を網羅し、どのような切り口から問われても瞬時に正解を導き出せるよう整理した完全比較表です。復習用のチェックシートとしてご活用ください。
| 被子植物の細分 | 花弁の癒合状態 | テスト頻出の代表種 | 解剖学的識別ポイント | 出題時の典型的な引っかけパターン |
|---|---|---|---|---|
| 双子葉類 合弁花類 |
花弁の基部が互いに合着し一体化している | アサガオ、ツツジ、タンポポ、ヒマワリ、キク、ピーマン、ナス | 花冠全体が一体となって落下する。 雄しべが花冠筒に合着していることが多い。 |
タンポポやヒマワリの花弁に見える部分は独立した花弁ではなく、1個の独立した合弁花(舌状花)である。 |
| 双子葉類 離弁花類 |
花弁が基部まで完全に独立して離れている | サクラ、アブラナ、エンドウ、インゲンマメ、バラ、リンゴ、ダイコン | 花弁が1枚ずつ個別に脱落する。 がく片と花弁が明瞭に分離。 |
アブラナ(十文字に4枚)やエンドウ(蝶形花)は特徴的な形をしているが、基部が合着していないため離弁花。 |
| 単子葉類 (花弁区分の対象外) |
花弁とがくの分化が不明瞭(花被片を形成) | イネ、トウモロコシ、ユリ、チューリップ、ツユクサ、ススキ | 子葉1枚、平行脈、ひげ根、維管束散在配列。 | チューリップやユリの花びらは6枚に見えるが、外側3枚はがくが変化したものであり、双子葉類の離弁・合弁の枠組みには含めない。 |
このように整理してみると、アサガオは花のサイズが極めて大きく、肉眼で観察するだけで「花弁同士が隙間なく完全に一体化している」という事実が誰の目にも疑いようもなく理解できるため、理科の授業における「合弁花類の絶対的スタンダード」として選ばれ続けている理由がよく納得できますね。
語呂合わせで覚える双子葉類と合弁花類
理科の勉強や受験対策において、概念を論理的に理解することは極めて大切ですが、限られた試験時間の中で確実に点数を結びつけるためには、直感的に引き出せる記憶のフックを持っておくことも同じくらい強力な武器になりますよね。特に植物の形態分類は専門用語が多く、暗記に苦労されるお子さんも多い分野です。
そこで、全国の学習塾や学校現場で長年受け継がれ、抜群の記憶定着率を誇る伝統的な「語呂合わせ」をご紹介します。まず、双子葉類が持つ身体の三大特徴(根、維管束、葉脈)を瞬時に思い出すための定番フレーズがこちらです。
双子葉類の体内構造を一発で覚える語呂合わせ
「主婦はもう大変」(しゅふはもうたいへん)
- 主(しゅ):主根と側根(中心に太い主根が伸びる)
- 婦(ふ・わ):維管束が輪(わ)状に整然と並ぶ
- もう:葉脈が網状脈(もうじょうみゃく・網目模様)
- 大変(たいへん):子葉が2枚の双子葉類(大変=2変と連想)
毎日の家事や育児に追われて「もう大変!」と奮闘するお母さんの姿を思い浮かべると、視覚的なイメージとともに一瞬で頭に定着しますよね。このフレーズさえあれば、「双子葉類の根はひげ根だったかな?」と迷う心配は一切なくなります。
続いて、テストの選択肢問題で最も正答率を左右する「合弁花類に属する主要な植物たち」をまとめて網羅する最強の語呂合わせフレーズです。アサガオ、ツツジ、タンポポ、ヒマワリという入試4大合弁花を完全に網羅しています。
合弁花類の代表種を完全網羅する語呂合わせ
「ごめん、朝つついた短気なヒマ人」(ごめん、あさつついたたんきなひまじん)
- ごめん:合弁花類(ごうべんかるい)
- 朝(あさ):アサガオ
- つつ:ツツジ
- 短気(たんき):タンポポ
- ヒマ人(ひまじん):ヒマワリ
ちょっとコミカルでストーリー性のあるシチュエーションなので、思わずクスッと笑ってしまいますよね。朝からイタズラで誰かをつついたら、短気なヒマ人に怒られて「ごめん!」と謝っている情景を想像してみてください。この短い1行を口ずさむだけで、外見からは合弁花と判断しづらいタンポポやヒマワリを、アサガオの仲間として完璧にグループ分けできるようになりますよ。
ナス目ヒルガオ科サツマイモ属の学術分類
ここまでは、主に学校教育カリキュラムの中で用いられてきた伝統的な形態学的分類基準を解説してきましたが、現代の植物科学の最前線に目を向けると、植物の系統分類はより精緻でDNAレベルの科学的根拠に基づいたシステムへと進化を遂げています。それが、被子植物系統グループ(Angiosperm Phylogeny Group)が提唱する「APG分類体系」です。
DNAの塩基配列解析に基づいて再構築されたこの最新のAPG体系において、アサガオはどのように位置づけられているのでしょうか。生物学的な分類階層を上位から下位へと順に辿ってみると、実に興味深い系統樹が浮かび上がってきます。
アサガオの最新分子系統分類(APG IV体系)
- 植物界(Plantae)
- 維管束植物門(Tracheophyta)
- 被子植物(Angiosperms)
- 真正双子葉類(Eudicots)
- キク類(Asterids)
- シソ類(Lamiids)
- ナス目(Solanales)
- ヒルガオ科(Convolvulaceae)
- サツマイモ属(Ipomoea)
- アサガオ(学名:Ipomoea nil)
アサガオの学名はIpomoea nil(イポメア・ニル)と表記されます。属名である「Ipomoea」の語源を探ると、古代ギリシャ語で木喰い虫や芋虫を意味する「ips(イプス)」と、〜に似ていることを意味する「homoios(ホモイオス)」という二つの単語が合体して生まれた言葉であることが分かります。支柱や周囲の木々に螺旋状に絡みつき、まるで虫が這い登っていくかのように旺盛につるを伸ばすその生態的特徴が、そのまま属名として刻まれているわけですね。また、種小名の「nil」は、青色を意味するアラビア語やサンスクリット語に由来しているとされ、アサガオの原種が持っていた鮮烈な青い花色を象徴しています。
科名に注目すると、アサガオは「ヒルガオ科」に属しています。日本国内においてはアサガオのほうが圧倒的に有名で園芸文化の中心にあるため、「なぜアサガオ科ではなくヒルガオ科なの?」と疑問に思われる方も少なくありません。しかし、近代植物分類学が発展したヨーロッパをはじめとする世界規模で見ると、自生種として広く分布し、学術的な記載の基準種(タイプ属)となったのがヒルガオ属(CalystegiaやConvolvulus)であったため、国際規約に則って「ヒルガオ科」という科名が採用されているのです。
食用作物サツマイモとの形態的な近縁関係
アサガオの学術分類において、一般の方々が最も強い衝撃を受けるのが、アサガオが「サツマイモ属(Ipomoea)」というグループに属しているという事実ではないでしょうか。「えっ、毎朝庭で眺めている観賞用のアサガオと、秋の味覚として大人気の焼き芋のサツマイモが、同じ属の親戚なの?」と、にわかには信じがたい結びつきに感じられますよね。
しかし、植物学の視点からサツマイモ(学名:Ipomoea batatas)という植物の生体を精査していくと、両者が紛れもなく同じ血統を引く兄弟種であることが、驚くほど明瞭に理解できます。普段、本州の畑で栽培されているサツマイモは、土の中にできる肥大した塊根(お芋)を収穫することが主目的であるため、農家さんも茎葉の成長を優先させ、花を目にする機会は滅多にありません。また、サツマイモは強烈な短日性を持つ熱帯原産の植物であるため、日本の本州の夏の日の長さでは開花スイッチが入りにくいという事情もあります。
ところが、熱帯地方や沖縄などの温暖地、あるいは秋が深まり急激に日が短くなった時期に、畑のサツマイモがひょっこりと花を咲かせることがあります。その咲いた花を一度でも目撃した方は、誰もが「これはアサガオそのものじゃないか!」と感嘆の声を上げずにはいられません。白から淡いピンク色をした美しい漏斗型の花冠、中心部が濃い赤紫色に染まる上品なグラデーション、そして花冠の内部に配置された雌しべと雄しべの構造に至るまで、アサガオの花と寸分違わぬ見事な合弁花を咲かせるのです。
花・葉・つる・乳液に見られる形態的相同性
アサガオとサツマイモの共通点は、花の構造だけに留まりません。草姿全体の形態学的な特徴を比較してみると、両者の遺伝的な近さを物語る共通点が次々と浮かび上がってきます。
- つる性の栄養成長:サツマイモもアサガオと同様に、自立する木質幹を持たず、地上を這い回るように旺盛につるを伸長させます。
- 葉の多様な形態変異:サツマイモの葉には心臓形(ハート型)から深く切れ込んだ三裂葉、五裂葉まで多彩な品種がありますが、これはアサガオの葉の多型性と完全に対応しています。
- 茎の白い乳液:生長中のサツマイモの茎やつる、あるいはアサガオの太い茎をハサミで切断すると、断面から白く粘り気のある乳液(ヤラピン等の配糖体を含む分泌液)が滲み出してきます。これはヒルガオ科サツマイモ属に広く共通する防御物質です。
- 接ぎ木による親和性:植物生理学の実験や品種改良の現場では、開花しにくいサツマイモの穂木をアサガオの台木に接ぎ木(高接ぎ)することで、アサガオから供給される開花誘導物質(フロリゲン)を利用してサツマイモを強制的に開花・結実させるという手法が確立されています。
スーパーの野菜売り場に並ぶ美味しいサツマイモと、夏の風情を届けてくれる可憐なアサガオ。一見するとまったく異なる世界に生きているように見える二つの植物が、同じサツマイモ属という揺るぎない絆で結ばれているという事実は、植物の世界の奥深さと多様性を象徴する素晴らしいエピソードですね。
生態や近縁種で見るアサガオは何類かの基準
さて、ここまでは主に学校理科のカリキュラムや植物分類学に基づいた「身体の構造や遺伝的な系統」を中心にお話ししてきました。しかし、実際にガーデニングで土に触れ、日々の水やりやつるの誘引を楽しんでいる園芸家や愛好家にとって、「アサガオは何類か」という問いは、もっとダイナミックな「植物の生き方や振る舞い」に向けられていることが多いですよね。ここからは、アサガオの生態的・生理的な側面に焦点を当て、その驚くべき生命の仕組みを紐解いていきましょう。
日本の気候下で一年草として育つ生態
園芸店でアサガオの種や苗を購入する際、商品ラベルや育て方マニュアルに必ず記載されているのが「春まき一年草」という分類表記です。植物の生活環(ライフサイクル)の長さに基づくこの分類において、アサガオは日本国内の露地栽培では名実ともに一年草(いちねんそう・一年生草本)として扱われています。
一年草とは、タネが発芽してから葉やつるを茂らせる栄養成長を行い、花を咲かせて受粉し、新たなタネを結実させたあと、1年未満のうちに植物体全体が枯死して生涯を閉じる植物のことです。春の5月頃にタネをまき、7月から8月に美しい花を楽しみ、秋の10月頃にたくさんのタネを収穫したあと、冬の訪れとともに茶色く枯れ果てていくアサガオの姿は、まさに私たちが親しんできた日本の夏の情景そのものですよね。
熱帯原産の多年草が生理的に内包する可塑性
しかし、植物生理学や原産地の生態系に詳しい方ならご存知の通り、アサガオという植物の本質は、必ずしも遺伝的にプログラムされた絶対的な一年草というわけではありません。アサガオのルーツである熱帯アジアや中南米の熱帯・亜熱帯地域においては、日本のような厳しい冬の降霜や凍結が存在しません。そうした年間を通じて温暖な環境下では、アサガオは花を咲かせたあとも枯れ果てることなく、何年にもわたってつるを伸ばし続け、茎の基部が次第に木質化していく「短命な多年草」としての生理的ポテンシャルを保持しているのです。
では、なぜ日本の気候下では一年草になってしまうのかというと、アサガオが熱帯性の植物であるがゆえに、「耐寒性」をまったく獲得していないからです。アサガオの細胞は、気温が10度を下回ると代謝機能が著しく低下し、5度以下になると葉が変色して壊死が始まります。そして一度でも強い霜に当たったり土壌が凍結したりすると、細胞内の水分が氷結して細胞膜をズタズタに破壊してしまい、地上部も地下の根も完全に死滅してしまうのです。
もし秋の終わりにアサガオの鉢植えを暖かい室内に取り込み、日当たりの良い窓辺で最低室温15度以上を保ちながら適切なLED補光と水やりを継続すると、日本の冬であってもアサガオは枯死することなく越冬し、翌春に再び力強い新芽を展開して開花することがあります。植物の一年草・多年草という境界線は、植物自身の性質だけでなく、その植物を取り巻く外部環境(気候)との相互作用によって決まる柔軟なものであることがよく分かりますね。
反時計回りに巻き登るつる性植物の性質
空間における成長様式や草姿に着目した場合、アサガオは自前の太い木質幹を形成して自立する樹木とは異なり、周囲の細い構造物に自らの茎を巻きつかせることで上空へと光合成器官を押し上げていくつる性植物に分類されます。重力に抗して強固な幹を太らせるための莫大なリグニン合成エネルギーを大胆に節約し、そのエネルギーのすべてをつるの素早い伸長と葉の大量展開へと投資する、極めて合理的で競争力に富んだ生育戦略ですね。
アサガオのつるの先端部分をじっくりと観察してみると、常にピンと斜め上方に立ち上がり、ゆっくりと円を描くように空中を旋回しているのが分かります。この自律的な首振り運動は、植物学において「回旋運動(かいせんうんどう・Nutational movement)」と呼ばれています。成長点の先端部にある細胞が、部位ごとに時間差をつけて交代で急速伸長を繰り返すことによって、まるで空間探査レーダーのように周囲360度を探索しているのです。そして、この旋回中のつるが支柱やネットなどの物体に接触すると、接触刺激を感知した内側の細胞の伸びが抑制され、外側の細胞が激しく伸長する「屈触性(くっしょくせい)」が発動し、目にも留まらぬ速さで螺旋を描いて巻きついていきます。
「右巻き」か「左巻き」か:長年続く定義の混乱を読み解く
ここで園芸ファンや理科好きの方々の間で必ず白熱した議論になるのが、「アサガオのつるは右巻きなのか、それとも左巻きなのか」という巻き方向の定義問題です。実はこの問題、観察者が立っている視点や、専門分野の慣習の違いによって、真逆の呼称が使われてきた歴史的経緯があるのです。
つるの巻き方向における二大学派の対立
- 植物学の伝統的定義(左巻き・左回り):自分が植物の根元から先端に向かってつるを登っていく立場に身を置いたとき、成長点の進む先が常に「自己の左前方」へと回り込んでいくことから、これを「左巻き」と定義します。支柱を真上から見下ろすと、つるは確実に「反時計回り」の軌道を描いて上昇します。
- 物理・工学および牧野富太郎博士の定義(右巻き・Z巻き):右手の親指を上(成長方向)に向けて支柱を握りしめたとき、残りの4本の指が巻きつく方向(右ネジを締め込む回転方向)と一致することから、これを「右巻き」と呼ぶ立場です。横から円筒を眺めた際、手前のつるが右肩上がりの傾斜を示すため、幾何学的には「Z巻き」と定義されます。
このように、「植物自身の主観的視点」に立つか、「外側からネジの螺旋構造を客観的に観察する視点」に立つかによって、同じ現象が「左」とも「右」とも呼ばれてしまうわけですね。そのため、現代の厳密な園芸書や科学コミュニケーションの現場では、単に「右」「左」という紛らわしい言葉を使うのを避け、「上から見下ろしたときに反時計回りに巻き登る」あるいは「側面から見たときに右肩上がりのZ巻きになる」と、誤解の生じない幾何学的な動態で記述することが推奨されています。
つるの回転とつぼみの回転に見られる驚異の非対称性
さらにアサガオの身体の神秘を感じさせるのが、茎のつると花冠のつぼみに見られる「回転方向の逆転現象」です。開花直前のアサガオのつぼみを真上から観察してみてください。花びらがキュッと螺旋状に折りたたまれている方向を見ると、なんとつるの巻き方向とは真逆の「時計回り(上から見て右回り)」に強くねじれて収縮しているのです。同一のゲノムを持つ1本の植物体の中で、茎の器官形成と花弁の器官形成において、それぞれ独立した逆向きのキラリティ(左右非対称性)が遺伝子レベルで厳密に制御されているという事実は、現代の発生生物学においても極めて魅力的な研究テーマとなっています。
暗期の長さで花芽をつくる短日植物の仕組み
アサガオが開花準備に入り、花芽(はなめ)を分化させる生理学的メカニズムに基づくと、アサガオは光周性(日長反応)の観点から短日植物(たんじつしょくぶつ)の最高峰のモデル生物として位置づけられています。「短日」という言葉の響きから、一般には「昼間の日照時間が短くなると花を咲かせる植物」とシンプルに解釈されがちですが、植物生理学の進歩によって解明された真実は、はるかに精密で劇的なものでした。
植物が季節の移り変わりを感知する決定的な鍵は、昼間の明るい時間(明期)の短さではなく、夜間の「光の一切ない連続した暗闇(暗期)」の持続時間にあります。アサガオの葉の細胞内には、「フィトクロム」と呼ばれる赤色光・遠赤色光を感知する光受容色素タンパク質が高度に張り巡らされており、これが砂時計のように夜の長さを高精度に計測しています。アサガオが栄養成長(つるや葉を伸ばす段階)から生殖成長(花を咲かせてタネを残す段階)へとスイッチを切り替えるために必要な最小限の暗闇の長さを「限界暗期」と呼び、本種においては約8時間から9時間の連続した暗闇が要求されます。
たった1回の暗闇でスイッチが入る驚異の鋭敏さ
アサガオの光周反応がいかに卓越しているかを示す証拠として、「1回誘導」という有名な現象があります。多くの短日植物(キクやダイズなど)は、適切な暗期を何日間も連続して経験しないと花芽を作ることができません。しかし、アサガオ(特に代表的な研究用品種である『ムラサキ』など)は、適切な環境で育てられた苗であれば、生涯の中でたった1回だけ約9時間以上の完全な暗闇を経験させるだけで、すべての成長点で不可逆的に花芽分化のスイッチが入り、全身に花を咲かせることができるのです。この驚くべき鋭敏さゆえに、アサガオは世界中の生化学者たちによって、植物の開花ホルモンである「フロリゲン」の正体を追究するための実験材料として長年重宝されてきました。
夜間の光中断(ナイトブレイク)による開花阻害の実態
この短日植物としてのメカニズムを理解する上で、園芸愛好家が絶対に知っておくべき現象が「光中断(ナイトブレイク)」です。アサガオに対して、必要とされる8〜9時間の暗期のちょうど真ん中の時間帯に、わずか数分間だけ懐中電灯や街灯の光をピカッと照射します。すると、その夜に存在した暗期の合計時間は十分に長いにもかかわらず、途中に光が挟まったことによって、フィトクロムの暗闇タイマーがゼロにリセットされてしまいます。その結果、アサガオは「まだ夜が十分に長くなっていない」と誤認し、花芽の形成が完全に停止してしまうのです。
都会のベランダ栽培で花が咲かない最大の原因
「アサガオの葉やつるは青々と見事に茂っているのに、夏が過ぎても一向につぼみがつかない」というご相談をよく耳にします。その原因の多くは、窒素肥料の過多だけでなく、ベランダのすぐ近くにある街灯の光や、防犯用のセンサーライト、あるいはリビングのカーテンの隙間から漏れる室内の明かりが夜間ずっとアサガオに当たり、光中断が起き続けていることにあります。立派な花をたくさん咲かせたい場合は、夜間に光が差し込まない完全な暗闇になる場所に鉢を移動させるか、段ボール箱をすっぽり被せて夜の暗闇を作ってあげる(遮光処理)と、驚くほど次々と花芽をつけてくれますよ。
朝日に限らず日没後の体内時計で開く開花生理
「朝顔」という風情ある名前の通り、誰もが「アサガオは東の空から昇る朝日の光を浴びることで、心地よい目覚めとともにパッと花を開くのだ」と信じて疑いませんよね。夏の早朝、朝露に濡れた花弁が光を受けて開く姿は、まさに早起きのご褒美のような美しさです。
しかし、近年の高精度なタイムラプス撮影や植物生理学的アプローチによって突き止められた真実は、私たちの直感を爽快に覆すものでした。アサガオの花が開くためのトリガー(引き金)は、朝の太陽光ではなく、実は前日の夕方に訪れた「日没(暗闇の始まり)」にあるのです。
アサガオのつぼみや花柄の組織には、地球の自転と同期する高度な自律的概日リズム(体内時計)が組み込まれています。夕方になり、周囲の光環境が日没を迎えて暗転すると、アサガオの体内時計は静かに、かつ正確無比にカウントダウンのタイマーをスタートさせます。そして、暗闇が始まってからおよそ8時間から10時間後が経過したとき、体内時計から花弁の細胞へ向けて一斉に開花指令が下されるのです。
細胞壁の再構築と急速な吸水による花冠の展開
開花指令を受け取ったつぼみの中では、目にも留まらぬ劇的な生化学的変化が進行します。花弁の内側の細胞壁を緩める酵素(エクスパンシンなど)が急速に分泌され、細胞内の浸透圧が劇的に上昇します。これにより、周囲の維管束から大量の水分が花弁の細胞内へと一気に流れ込み、細胞が風船のようにパンパンに膨張します。この急激な細胞伸長圧によって、折りたたまれていた花弁が押し広げられ、わずか数十分から1時間足らずの間に、あの見事な円錐形の花冠がパッと展開するのです。このプロセスは完全な水圧駆動システムであるため、朝日が昇っていようがいまいが、タイマーの時間さえ来れば漆黒の闇の中でも自動的に開花が完了します。
季節の推移による開花時刻の劇的なシフト
「日没からの経過時間で咲く」という体内時計のシステムを理解すると、季節の移り変わりによってアサガオの開花時刻が大きく変化する不思議な現象が、論理的にすっきりと説明できるようになります。
- 夏至直後の7月上旬:日没時刻は非常に遅く、19時半頃まで薄明るい状態が続きます。そこから体内時計が9時間〜10時間をカウントダウンするため、開花時刻は翌朝の午前5時頃から5時半頃となります。まさに人間が活動を開始する爽やかな「早朝」にぴったり重なるわけですね。
- 秋分を過ぎた9月下旬〜10月:日の入りは急速に早まり、夕方の17時半頃にはすっかり暗闇に包まれます。そこから同じように9時間〜10時間を正確にカウントダウンすると、開花時刻はなんと午前3時頃から午前4時という、夜明け前の完全な「深夜・未明」になってしまうのです。
秋の早朝、まだ夜が明けきらない午前4時半頃にお庭に出てみると、懐中電灯の光の中にすでに満開になって静かに佇むアサガオの姿を見ることができます。「朝に咲く花」と名付けられた植物が、実は夜の始まりを忠実に記憶し、暗闇の中で人知れずタイマーを合わせている。そう思うと、自然界のリズムの深淵さに、何とも言えない愛おしさを感じてしまいますよね。
ヒルガオやヨルガオとの形態と生態の相違点
初夏から初秋にかけて野山や散歩道を歩いていると、アサガオと見紛うような美しい漏斗型の花を咲かせているつる植物に頻繁に出会いますよね。「おや、こんな道端にアサガオが自生しているのかな?」と近寄ってみると、実はそれが「ヒルガオ」であったり、夕暮れ時の庭先で純白の花を咲かせる「ヨルガオ」であったりします。これらはアサガオとどのような血縁関係にあり、どのような違いを持っているのでしょうか。
野山やあぜ道を逞しく這う在来の宿根草「ヒルガオ」
もっとも身近な類似種である「ヒルガオ(学名:Calystegia japonica)」は、アサガオと同じヒルガオ科に属していますが、属のレベルでは「ヒルガオ属」という独立したグループに分類されます。アサガオが熱帯原産の外来草本であるのに対し、ヒルガオは日本を含む東アジアに古くから自生してきた立派な在来植物です。
生態的な最大の違いは、アサガオが冬の寒さで枯死してタネで越冬する一年草であるのに対し、ヒルガオは土壌深くに細長く強靭な白い地下茎を縦横無尽に伸ばして冬を越し、翌春に再び何事もなかったかのように芽を吹き出す多年草(宿根草)であるという点です。また、花色にも明確な違いがあり、多様な色彩を誇る園芸アサガオとは異なり、ヒルガオは清楚で落ち着いた淡いピンク色(桜色)の花しか咲かせません。そして何より、アサガオが早朝に咲いて昼前にはしぼんでしまうのに対し、ヒルガオは夏の強い直射日光を浴びながら、日中いっぱい夕方まで堂々と咲き続けるというタフな性質を持っています。結実することは極めて稀で、主に地下茎の断片がちぎれて運ばれることによって驚異的な生命力で増殖していきます。
夜の闇に純白の大輪を咲かせ芳香を漂わせる「ヨルガオ」
一方、夏の夕暮れ時に幻想的な美しさで私たちを魅了するのが「ヨルガオ(学名:Ipomoea alba)」です。こちらはヒルガオよりもアサガオに系統的に近く、同じサツマイモ属に属する熱帯アメリカ原産のつる性植物です。
ヨルガオの最大の特徴は、夕暮れの日没とともにゆっくりと蕾をほどき始め、直径10センチから15センチメートル以上にも達する見事な純白の大輪花を夜空に向けて咲かせる点にあります。そして、暗闇の中で活動する夜行性の送粉者(主に口吻の非常に長いスズメガの仲間)を誘引するために、甘く高貴なジャスミンやバニラを思わせる濃厚で素晴らしい芳香を周囲一面に漂わせます。花は翌朝の太陽の光を浴びると急速にしぼんでピンクがかった色へと変色して落下します。夜涼みのお供としてベランダに緑のカーテンとして仕立てる愛好家も非常に多い魅力的な植物ですね。
ウリ科ユウガオやナス科毒草との科レベルの差
植物の名称と分類を学ぶ上で、最も混乱を招きやすく、かつ人命や健康に関わる重大な注意を要するのが、「ユウガオ(夕顔)」と「チョウセンアサガオ」という二つの植物の存在です。名前に「顔」や「アサガオ」という文字列が含まれているため、一般にはアサガオの仲間だと混同されがちですが、植物分類学の視点から見ると、これらは科のレベルでまったく異なる別系統の植物たちなのです。
お寿司のかんぴょうを生み出す全くの別系統「ユウガオ」
『源氏物語』の夕顔の巻など、古来より文学の世界でも親しまれてきた「ユウガオ(学名:Lagenaria siceraria var. hispida)」は、ヒルガオ科ではなく、なんとヘチマやカボチャ、キュウリ、スイカと同じウリ科(Cucurbitaceae)ユウガオ属に属する巻きひげ植物です。
花の形をよく観察してみると、アサガオのような継ぎ目のない滑らかな漏斗型ではなく、花びらの縁が和紙のように細かく波打ってクシャクシャと縮れた、繊細な白い花を夕方に咲かせます。そして受粉後に実る果実は、植物好きなら誰もが知る巨大なウリ状果(瓢箪に似た球形や長楕円形)となり、成長すると重さ数キロから十数キログラムにも肥大します。この巨大な果肉を職人さんが特殊なカンナで帯状に薄く削り出し、真夏の太陽の下でカラカラに天日干しした加工食品こそが、巻き寿司や煮物でお馴染みの「かんぴょう(干瓢)」なのです。園芸市場では、前述のヒルガオ科の「ヨルガオ」が誤って「夕顔」という通称で苗やタネが販売されていることが頻繁にありますが、かんぴょうが採れる本物のユウガオはウリ科の植物ですので、明確に区別しておきたいですね。
美しき花に猛毒を秘めた危険植物「チョウセンアサガオ」
そして、園芸を愛するすべての人が絶対に正確な知識を持っておかなければならないのが、「チョウセンアサガオ(学名:Datura属)」の存在です。夏から秋にかけて、上向きや横向きに白や淡い紫色の立派なトランペット型の花を咲かせるため、アサガオの巨大な改良品種か何かと勘違いされてしまうことがありますが、分類学上はトマトやジャガイモ、ナスと同じナス科(Solanaceae)に属しています。
チョウセンアサガオはアサガオのような巻きつくつるを持たず、太く頑丈な茎が自立して二股に枝分かれを繰り返し、草丈1メートル以上の堂々たる低木状の草姿に育ちます。そして何よりも恐ろしいのは、全草(根、茎、葉、花、種子のすべて)に「l-ヒヨスチアミン(アトロピン)」や「スコポラミン」といった強力な中枢神経毒性を持つトロパンアルカロイドを大量に含有している猛毒植物であるという点です。
家庭菜園での誤食事故に対する厳重な警告
チョウセンアサガオの根をゴボウと間違えて掘り起こしてきんぴらにしてしまったり、蕾をオクラと見誤って天ぷらにして口にしてしまい、激しい口渇、瞳孔散大、幻覚、意識混濁、呼吸停止といった重篤な中毒事故を引き起こす事例が毎年のように公的機関から警告されています。かつて江戸時代の名医・華岡青洲が世界初の全身麻酔手術を成功させた際に開発した麻酔薬「通仙散(つうせんさん)」の主原料となったことでも有名ですが、素人が扱うのは命に関わる極めて危険な行為です。家庭菜園の近くに自生しているのを見かけた際は、絶対に野菜と混植せず、抜き取る際も手袋を着用して慎重に取り扱ってください。詳細な毒性情報や過去の事故事例については、公的機関の一次情報(出典:厚生労働省『自然毒のリスクプロファイル:高等植物:チョウセンアサガオ』)に詳しい症例や鑑別法がまとめられていますので、ぜひ一度目を通しておいてくださいね。
アサガオとその類似植物の識別まとめ
名前や外見が似ているため混同されやすい植物たちの決定的な違いを、一目で判別できるように整理したマスターテーブルです。
| 植物名 | 植物分類(科・属) | 生育形・茎の支持様式 | 開花時間帯と特徴 | 花冠の形態と色彩 | 人間生活との関わり |
|---|---|---|---|---|---|
| アサガオ | ヒルガオ科 サツマイモ属 |
つる性(反時計回りに巻き登る) 一年草 |
早朝〜午前中 (日没後8〜10時間で開花) |
滑らかな漏斗型合弁花 青、紫、紅、白など極めて多彩 |
夏の観賞用園芸植物の代表。 古くは種子を生薬「牽牛子」として利用。 |
| ヒルガオ | ヒルガオ科 ヒルガオ属 |
つる性(巻き登る) 多年草(強靭な地下茎で越冬) |
昼間(朝から夕方まで開花持続) | 小型の漏斗型合弁花 淡いピンク色(桜色)単色 |
身近な野草・雑草。地下茎により強烈に繁殖。 花期が長く昼間も観賞可能。 |
| ヨルガオ | ヒルガオ科 サツマイモ属 |
つる性(巻き登る) 一年草(原産地では多年草) |
夕暮れ〜夜間 (翌朝の直射光でしぼむ) |
大輪の漏斗型合弁花(10〜15cm) 純白・強い甘い芳香を放つ |
夜間のガーデンテラス観賞用。 スズメガによる送粉に適応。 |
| ユウガオ | ウリ科 ユウガオ属 |
つる性(巻きひげで他物に登る) 一年草 |
夕方〜翌朝 (夜間に受粉) |
花弁の縁が縮れた離弁構造に近い花 純白色 |
巨大な果実の果肉を削って乾燥させ、 食品の「かんぴょう」を製造。 |
| チョウセンアサガオ | ナス科 チョウセンアサガオ属等 |
直立する草本(木質化する低木状) つるを巻かない |
夕方または昼間 (上向きまたは横向きに開花) |
大型のラッパ状合弁花(10〜20cm) 白、黄、紫など |
全草に猛毒(トロパンアルカロイド)。 かつて華岡青洲が麻酔薬原料として使用。 |
表を見比べていただくと一目瞭然ですが、茎がつるを巻くのか自立するのか、花が朝咲くのか夜咲くのか、そして実るものがタネなのか巨大なウリなのかという点に注目するだけで、目の前にある植物が何類に属しているのかを確信を持って見極めることができますね。
薬用植物の牽牛子として伝来した歴史
今でこそ、アサガオといえば日本の夏の風物詩であり、誰もが小学生の頃に愛着を持って育てる国民的園芸植物としての地位を確立していますよね。しかし、アサガオの日本列島における歴史の扉を開いてみると、そこには私たちの想像をはるかに超えた意外なルーツが横たわっています。
日本列島へのアサガオの渡来時期については諸説ありますが、定説では奈良時代末期から平安時代初期にかけて、海を渡った遣唐使たちが中国大陸から持ち帰ったのが始まりとされています。そして極めて興味深いことに、渡来当初のアサガオは、庭先に植えて美しい花を愛でるための園芸植物などでは一切ありませんでした。当時の支配階級や医師たちが喉から手が出るほど欲しがったのは、その完熟したタネが秘めている強烈な「下剤・利尿剤としての薬効」だったのです。
牛一頭を謝礼にするほど高価だった生薬「牽牛子」
東洋医学(漢方)の古典において、アサガオの硬い種子は「牽牛子(けんごし)」、あるいは種皮の色に応じて「黒丑(こくちゅう)」「白丑(はくちゅう)」という格式高い生薬名で記録されています。アサガオの種子には、「ファルビチン」や「コンボルブリン」と呼ばれる樹脂配糖体成分が高濃度に含まれており、これが大腸の蠕動運動を極限まで刺激して滞留した便を強制的に排出させる強力な瀉下作用、および体内の余分な水分を腎臓から排泄させる利尿作用を発揮します。
衛生環境や医療が未発達だった古代において、頑固な便秘や水腫(腹水や浮腫)は人命を脅かす深刻な疾患でした。そうした難病に対して劇的な効果をもたらすアサガオのタネは、まさに奇跡の特効薬としてもてはやされたのです。そして、この貴重な薬を処方してもらい病が平癒した裕福な貴族や豪農が、その絶大な謝礼として、当時の農業経済における最高級の財産であった「牛を一頭引き連れて医師に差し出した」という故事から、「牛を牽(ひ)いて謝礼に充てたタネ」という意味を込めて「牽牛子(けんごし)」という名が授けられたと伝えられています。
平安時代中期に編纂された日本最古の薬名辞典である『本草和名(ほんぞうわみょう)』(918年頃)には、「牽牛子 和名阿佐加保」という極めて重要な一節が登場します。それまで万葉集などの古代歌謡において「朝顔(あさがほ)」と呼ばれていた言葉は、特定の1種類の植物を指す固有名詞ではなく、「朝の清々しい時間に可憐に咲く花全般(キキョウやムクゲ、ヒルガオなど)」を指す風雅な普通名詞でした。しかし、牽牛子という薬用植物の導入を契機として、その朝方に咲く鮮烈な青い花姿と結びつき、次第に私たちが知るこの植物専用の名前として「アサガオ」が定着していったのです。
現代医学における劇薬指定と家庭での服用の危険性
このように歴史的には貴重な生薬として重用されてきたアサガオのタネですが、現代の生化学および薬理学の知見に照らし合わせると、その作用はあまりにも苛烈であり、毒性と紙一重の劇薬に位置づけられます。
家庭での種子利用に関する絶対的な禁止事項
昔の民間療法や生薬の知識を真に受けて、「便秘に効くから」とお庭で収穫したアサガオのタネを素人がすりつぶして煎じて飲んだりすることは、極めて危険ですので絶対にやめてください。ファルビチンは腸粘膜を激しく充血させ、過剰に摂取すると激痛を伴う下痢、激しい嘔吐、血便、脱水症状、さらには血圧低下によるショックを引き起こす恐れがあります。漢方薬としての牽牛子は、専門の漢方医や薬剤師が極めて微量を他の生薬と精密に調合して初めて成立する高度な医療用資材です。健康に関する判断は自己判断で行わず、必ず専門医や薬剤師などの専門家にご相談くださいね。
変化朝顔の育種に見る先駆的なメンデル遺伝
平安時代に薬用植物として日本に根を下ろしたアサガオが、世界中の植物学者や園芸史家たちを今なお驚嘆させ続ける一大バイオテクノロジー文化へと昇華したのが、江戸時代の中期から後期にかけての時代です。徳川幕府による泰平の世が続き、町人層に経済的・文化的なゆとりが生まれた文化・文政期(1804〜1830年)、そして嘉永・安政期(1848〜1860年)の江戸の街において、空前絶後の熱狂的なブームを巻き起こしたのが「変化朝顔(へんかあさがお)」の栽培と育種でした。
変化朝顔とは、突然変異によって普通のアサガオの形態から極端に逸脱した、奇々怪々で息を呑むほど妖艶な花や葉を持つ変異個体群の総称です。花びらがナデシコのように細かく糸状に裂ける「切弁(きりべん)」、花の中に無数の花びらがバラのように幾重にも重なり合う「牡丹咲き(ぼたんざき)」、花びらの中心から別の花が筒状に突き出す「二重咲き」、さらには葉が針や柳のように細くなる「柳葉」、葉の表面が縮緬状に縮れる「縮緬葉」など、そのバリエーションは数百種類にも及びました。
動く遺伝子「トランスポゾン」が引き起こす奇跡の変異
現代の最先端の植物分子生物学の解析によって、江戸時代の人々を熱狂させたこの変化朝顔の正体が科学的に解明されています。その原動力となっていたのは、DNA配列の内部を自発的に切り離し、別の遺伝子の場所へと飛び跳ねて移動する「トランスポゾン(動く遺伝子)」の活発な活動でした。
アサガオが保持するトランスポゾン(Tpnファミリー)が、花の器官形成の基本設計図である「ABCモデル関連遺伝子(MADS-box遺伝子)」や、花色の色素を合成するアントシアニン生合成遺伝子の内部へとランダムに飛び込んで遺伝子を破壊したり、逆に再び飛び出して機能を回復させたりすることによって、あの万華鏡のような奇跡の形態変異が次々と生み出されていたのです。
メンデルに先駆けること半世紀:江戸の愛好家が実践した分離の法則
しかし、変化朝顔の歴史において最も衝撃的であり、私たちが誇るべき事実は、オーストリアの修道士グレゴール・メンデルがかの有名な「エンドウ豆の遺伝の法則」の論文を発表した1865年よりも数十年も前に、江戸の植木屋や旗本、町人といった在野の愛好家たちが、経験的な観察と緻密な交配記録のみによって、現代のメンデル遺伝学を完璧に実用レベルで使いこなしていたという歴史的事実です。
変化朝顔の中でも、最も奇怪で観賞価値の高い極限の変異個体(これらを「出物:でもの」と呼びます)は、花びらが極度に八重化したり雄しべや雌しべが花弁化・退化してしまっているため、自力で花粉を作ったり受粉してタネを結実させたりする能力を完全に喪失しています(完全不稔)。つまり、出物の花からタネを採って翌年に増やすことは、物理的に100%不可能なのです。
では、江戸の人々はどうやってこの一代限りの幻の花を、翌年も、そして何代にもわたって途絶えさせることなく咲かせ続けたのでしょうか。彼らは、見た目はごく普通の結実能力を持つ一重咲きのアサガオでありながら、体の中に変異遺伝子を隠し持っている個体(現代の遺伝学でいうヘテロ接合体:Aa)を鋭い鑑識眼で選び出し、これを「親木(おやぎ)」として厳重に管理して自家受粉させていたのです。
江戸時代に実践されていたメンデルの分離の法則
変異遺伝子を「a」、正常遺伝子を「A」としたとき、親木(Aa)同士を交配させると、次世代の種子からは以下の確率で形質が分離します。
Aa × Aa → AA(正常:1) : 2Aa(親木:2) : aa(出物:1)
江戸の愛好家たちは、この数式を知る由もありませんでしたが、「親木から採れたタネをまくと、ちょうど4本に1本(25%)の正確な確率で、タネのできない幻の『出物(aa)』が出現する」という分離比の法則を完璧に体得していました。そして、残りの3本の中から、幼苗期の子葉のわずかな奇形を手がかりにして次世代の親木(Aa)を寸分違わず選抜し、血統を何世代にもわたって維持・継承し続けたのです。
顕微鏡もDNAの概念も存在しなかった封建時代の日本において、市井の人々が自然界の遺伝メカニズムを直感的に手なずけ、生きた芸術品として昇華させていた情熱には、ただただ深い畏敬の念を抱かざるを得ませんよね。この江戸時代の園芸家たちが遺した奇跡の遺伝子系統や突然変異の分子基盤は、現在も学術研究の一次情報源として体系的に保存・公開されています(出典:大阪大学・基礎生物学研究所・九州大学等共同発表『アサガオの全ゲノム配列をほぼ完全に解読』)。数千に及ぶ系統がナショナルバイオリソースプロジェクト(NBRP)を通じて継代保存され、現代の最先端ゲノム研究を支える世界的な宝物として輝き続けています。
アサガオは何類かの疑問を解消する総まとめ
ここまで、身近な夏の象徴であるアサガオを巡って、小学校や中学校の理科で習う解剖学的な分類基準から、最新の分子系統学、過酷な自然を生き抜くための生態学的適応、近縁種との見分け方、そして歴史のロマン溢れる育種文化に至るまで、多角的な視点からその真の姿を掘り下げてきました。最初に「アサガオ 何類」と検索窓に打ち込んだときの素朴な疑問は、すっきりと解消されましたでしょうか。
私たちが探求してきた通り、「アサガオは何類か」という問いに対する答えは、あなたがどのような場面や文脈でその答えを求めているかによって、美しく調和のとれた複数のレイヤーを持っています。
- 学校の理科テストや入試の文脈:アサガオは胚珠が子房に包まれた被子植物であり、2枚の子葉と網状脈・主根側根を持つ双子葉類であり、5枚の花弁が基部で一体化した合弁花類である、というのが完璧な正解となります。
- ガーデニングや栽培管理の文脈:日本の屋外環境では冬の寒さで枯れるため春まき一年草であり、反時計回りに支柱へ巻き登るつる性植物であり、夜の暗闇の長さを感知して花を咲かせる短日植物である、というのが実践的な答えとなります。
- 植物系統学や自然観察の文脈:最新のAPG体系においてナス目ヒルガオ科サツマイモ属に位置し、食卓のサツマイモと瓜二つの花を咲かせる兄弟種であり、多年草のヒルガオやウリ科のユウガオ、猛毒のナス科チョウセンアサガオとは明確に異なる独自の進化を遂げた植物である、というのが科学的な結論です。
アサガオは、ただ朝に咲いて昼にしぼむだけのありふれたお花ではありません。そこには、数億年の進化が育んだ植物の精緻な身体構造と、夜の長さを一分一秒の狂いもなく測り続ける驚異の体内時計、そして海を渡って薬となり、江戸の粋人たちによって世界最高峰のバイオアートへと磨き上げられた豊かな歴史の物語が凝縮されています。
この記事を通じて、アサガオの分類に関する知的好奇心が満たされただけでなく、明日からベランダやお庭で向き合うアサガオの姿が、昨日までよりもずっと愛おしく、誇らしく感じていただけたなら、編集部としてこれ以上の幸せはありません。今年の夏はぜひ、つるの伸びる向きや花冠のつくり、そして夕暮れの光の中で静かに明日の準備を始めるアサガオの息づかいに耳を澄ませながら、素晴らしいガーデニングライフを満喫してくださいね。
この記事の要点まとめ
- 種子をつくって子孫を残す種子植物である
- 胚珠が子房に包まれて保護されている被子植物に属する
- 発芽したときに左右対称な2枚の子葉を展開する双子葉類である
- 葉には網目状の網状脈が広がり根は主根と側根の構造を持つ
- 茎の内部の維管束は形成層を挟んで規則正しい輪状に配列している
- 5枚の花弁の基部が完全に一体化した漏斗型の合弁花類である
- タンポポやヒマワリと同じ合弁花の仲間として理科テストに頻出する
- 分子系統分類のAPG体系ではナス目ヒルガオ科サツマイモ属に位置する
- 野菜のサツマイモとは花や草姿の構造が瓜二つの極めて近い親戚である
- 熱帯では多年草だが日本の冬の寒さに耐えられないため一年草として育つ
- 真上から見下ろすと反時計回りに支柱へ巻き登るつる性植物である
- 一定時間以上の連続した暗期を感知して花芽をつくる短日植物である
- 開花は朝日ではなく前日の日没から約8〜10時間後の体内時計で決まる
- 昼も咲くヒルガオや夜に香るヨルガオとは科や属および生態が異なる
- かんぴょうの原料となるユウガオはウリ科であり毒草のチョウセンアサガオはナス科である
- 平安時代に牛と交換されるほど貴重な下剤の生薬である牽牛子として渡来した
- 江戸時代の変化朝顔ブームではメンデルの法則に先駆けた遺伝選抜が行われた