




こんにちは。My Garden 編集部です。
小学校の理科の授業や夏のベランダ栽培でおなじみのアサガオですが、ふと植物としての分類を振り返ったとき、アサガオが双子葉類に分類される理由や単子葉類との具体的な違いについて気になったことはありませんか。
子どもの夏休みの宿題を手伝っている保護者の方や、中学受験や高校入試に向けて理科の植物分野を総整理したい学生さん、あるいは家庭菜園やガーデニングが好きで植物の生態をもっと深く知りたいと考えている方まで、多くの方がこの疑問にたどり着くようです。
いざ調べてみると、子葉が2枚出るから双子葉類という単純な話だけではなく、葉脈の走り方や根の張り方、茎の中にある維管束の並び順、さらには花びらのくっつき方や種子の栄養の蓄え方に至るまで、植物の体全体に驚くほど精巧なルールが隠されていることに気づかされます。
アサガオとツユクサの違いは何なのか、花びらが1枚に見えるのにどうして合弁花類と呼ばれるのか、なぜアサガオの種には胚乳がないのかなど、試験で頻出するポイントやつまずきやすい疑問もたくさんありますよね。
この記事では、アサガオが双子葉類として分類される形態学的な根拠から、単子葉類との構造的な比較、さらにはつるの巻き方や開花の不思議、栽培時に失敗しないためのコツまで、植物観察がぐっと面白くなる知識をわかりやすく丁寧にお届けします。
テスト対策の暗記用としてはもちろん、日々の園芸ライフで植物を見る目がちょっぴり変わる楽しい読み物としても、ぜひ最後までお付き合いいただけたら嬉しいです。
- アサガオが双子葉類に分類される決定的な形態的特徴と体内構造のルール
- 葉脈や根系や維管束の配置から見分ける双子葉類と単子葉類の明確な違い
- 合弁花類としての花冠構造と栄養を子葉に蓄える無胚乳種子の発生の仕組み
- 直根性の性質やつるの巻き方向を踏まえた失敗しない栽培管理と試験対策の要点
- アサガオが双子葉類に分類される理由と体の特徴
- 双子葉類のアサガオに見る生態と栽培・観察の要点
アサガオが双子葉類に分類される理由と体の特徴
アサガオが植物分類学において双子葉類とされる背景には、外見から確認できる分かりやすい特徴だけでなく、顕微鏡レベルで観察される茎や根の内部組織、さらには受精後の種子形成プロセスに至るまで、実に理路整然とした解剖学的根拠が存在します。単に芽が出たときに葉っぱが2枚あるという現象は、植物が長い進化の歴史の中で獲得してきた体全体の構築プラン(ボディプラン)のほんの入り口に過ぎません。現在でもアサガオは、日本の古典園芸植物としての枠を超え、分子生物学や植物生理学のモデル植物として世界中で研究が進められています(出典:文部科学省・日本医療研究開発機構 ナショナルバイオリソースプロジェクト『NBRPアサガオ(九州大学)』)。ここでは、アサガオの体をつくる主要な器官を一つひとつ紐解きながら、なぜこの植物が双子葉類の典型例として教科書で取り上げられ続けているのか、その理由をじっくり見ていきましょう。
発芽時に展開する2枚の子葉とバタフライ形
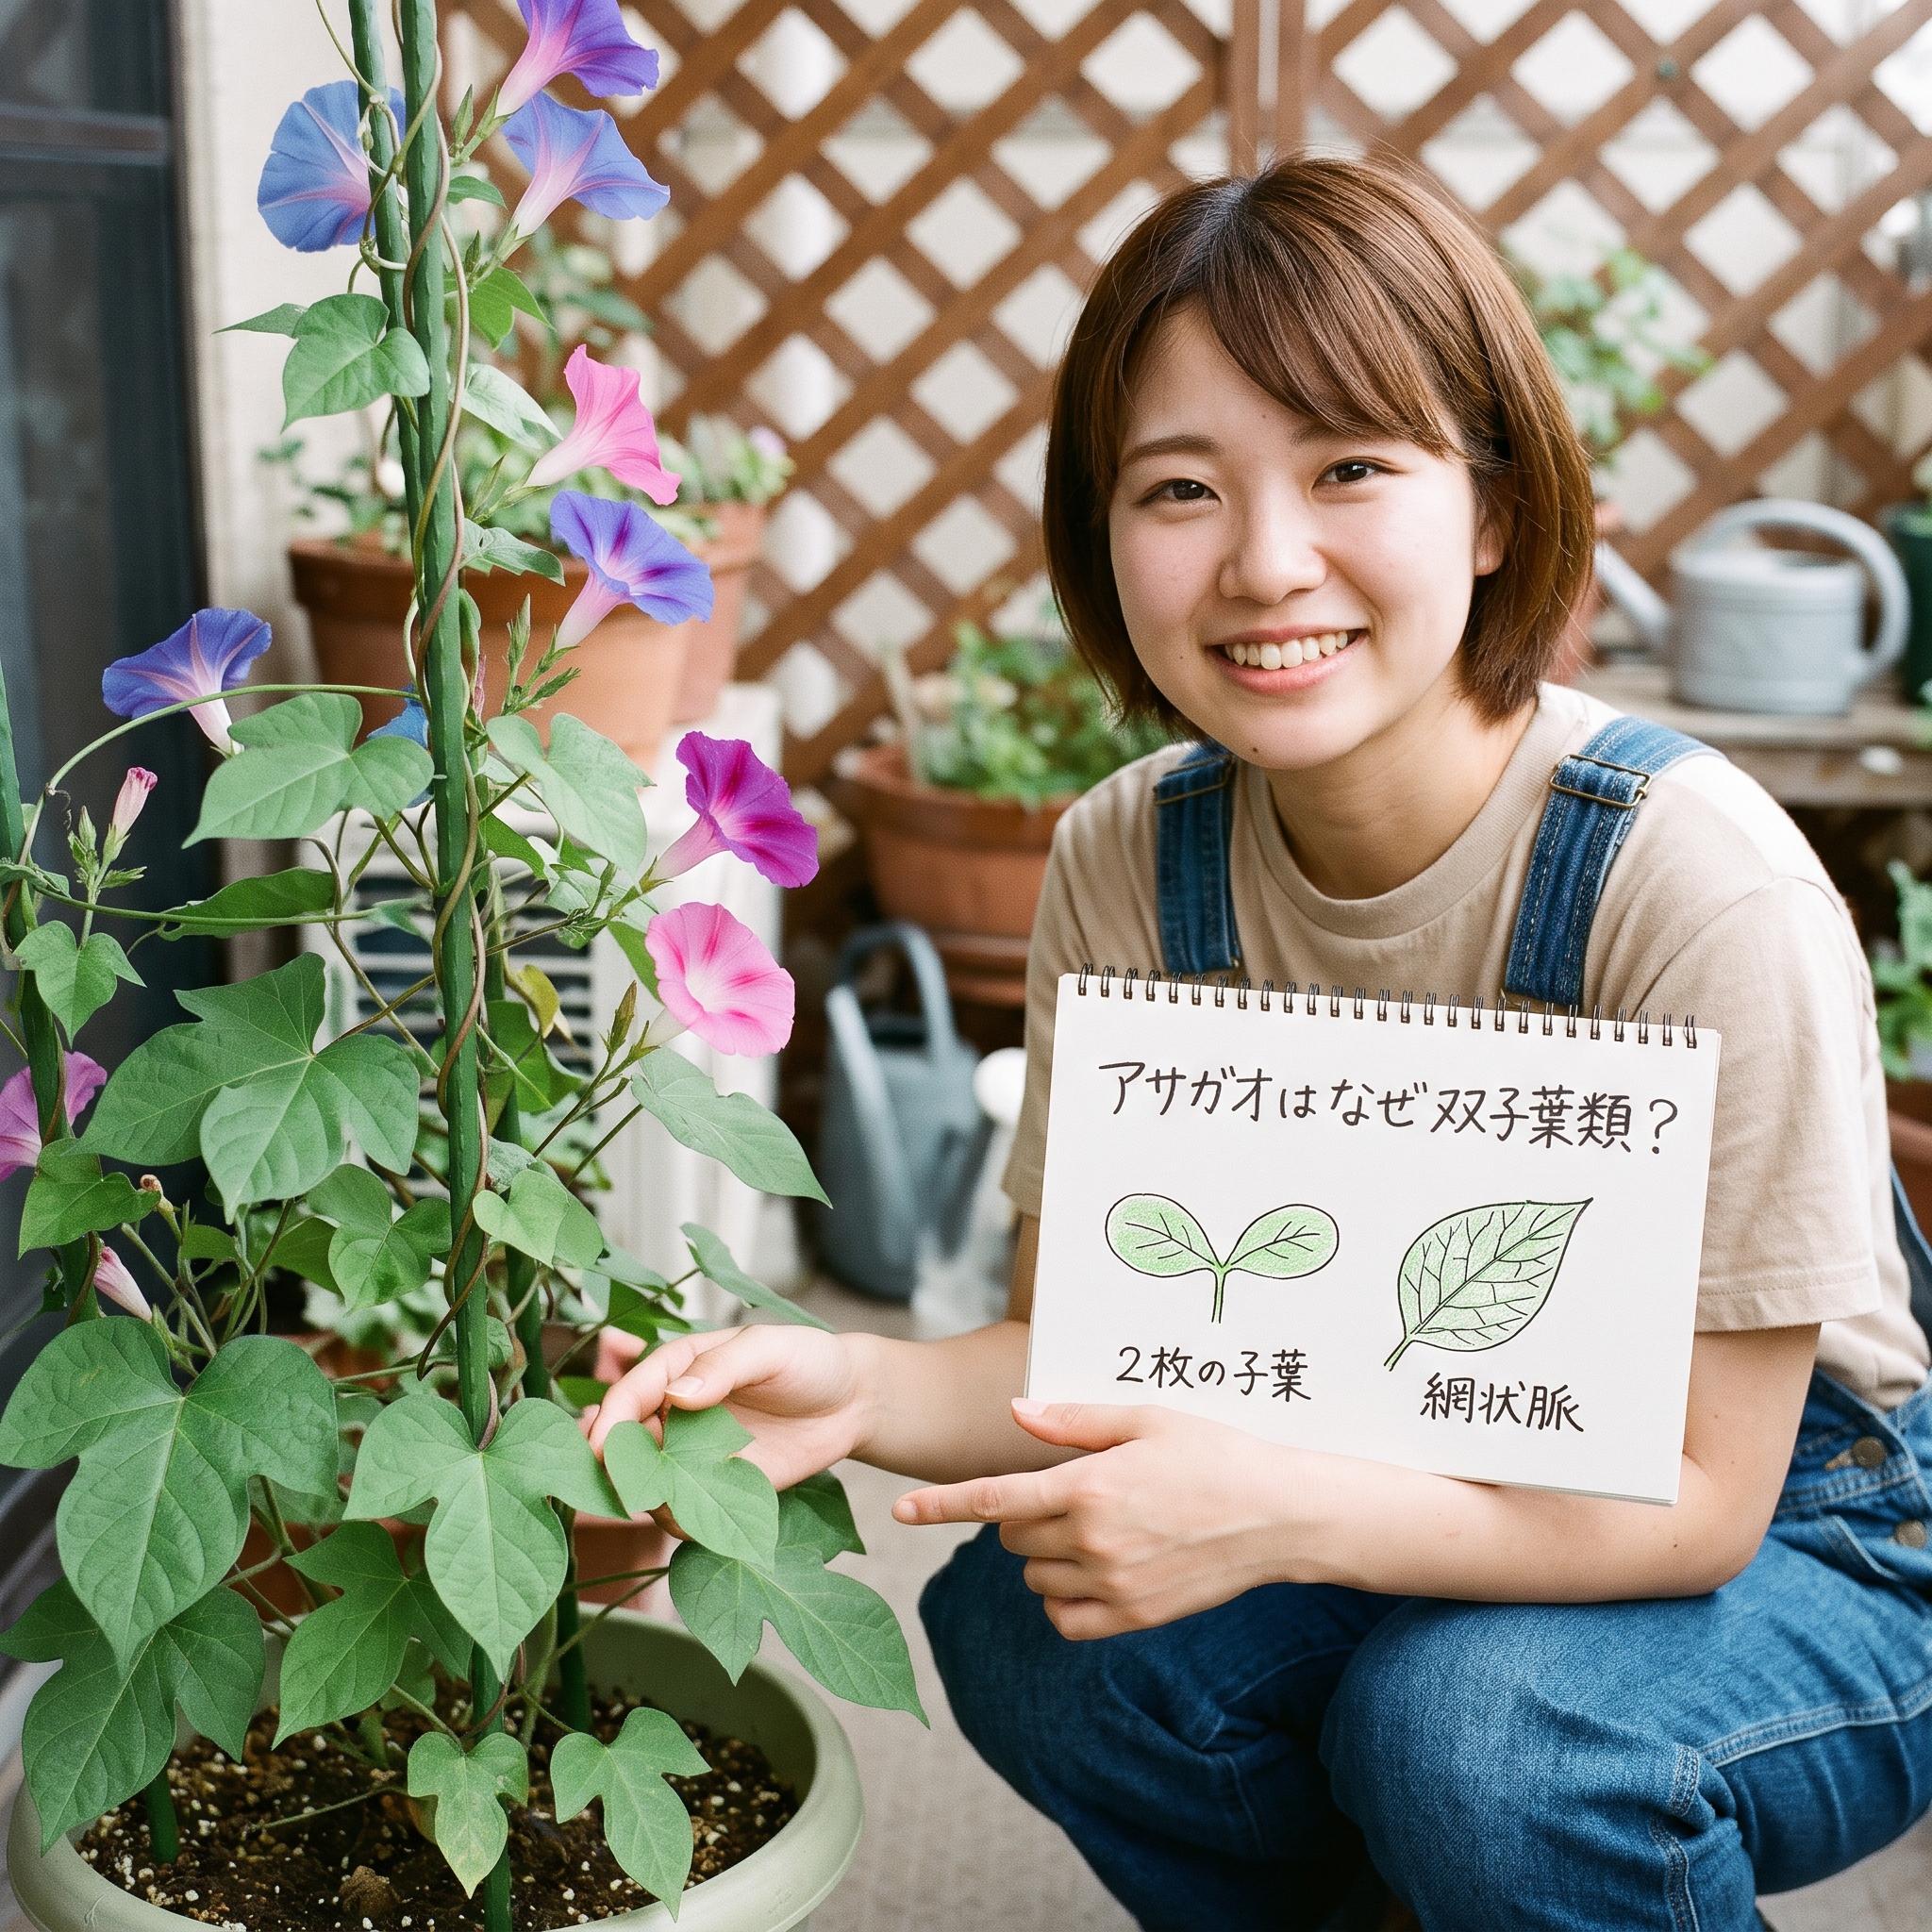
タネをまいて適切な温度と水分が与えられると、硬い種皮を破って最初に姿を現すのが子葉(しよう)です。アサガオは発芽した瞬間に、まるで示し合わせたかのように左右対称の2枚の葉を広げます。この「最初に開く葉が2枚であること」こそが、双子葉植物(双子葉類)というグループ名の直接の由来となっています。初等教育の理科でも必ず観察する最も基本的で象徴的なシーンですが、この最初の2枚の葉には、植物学的に非常に奥深い造形とメカニズムが凝縮されているのをご存じでしょうか。
バタフライ形と腎臓形が持つ独特の幾何学形態
アサガオの子葉をじっくり観察したことがある方なら、その形がとても個性的であることに気づいているかもしれません。一般的な草木の子葉といえば、ヒマワリやアブラナのように丸っこい楕円形やすっきりとした卵形をしているものが多いのですが、アサガオの子葉は中央部分が深く大きくくぼみ、左右に力強く張り出した独特の形状をしています。この形はよくチョウが羽をいっぱいに広げたようなバタフライ形や、そら豆のような腎臓形と表現されます。子どもたちが理科のスケッチで最初に描くあの愛らしいシルエットですね。葉の付け根から2つの大きな突出部が左右へ広がる姿は、他の植物の芽生えと比べても一目でアサガオだと分かるほど特徴的です。
狭い種皮内に収まるためのパッキングと折りたたみ構造
このユニークな形には、植物形態学的にとても合理的で必然的な理由が存在します。アサガオのタネは非常に硬く分厚い種皮に覆われており、限られた内部容積の中に、これから成長するためのすべての器官をあらかじめ格納しておかなければなりません。後述するように、アサガオの子葉は極めて肉厚で大型であり、発芽初期の栄養源としての役割を一手に担っているため、平らなシート状のままではタネの中に到底収まりきらないのです。
そこでアサガオは、子葉の中央の深いくぼみを中心軸として、扇子や折り紙のように幾重にも複雑かつ規則正しく折りたたまれた状態で種子の中に収納されるという驚異的なパッキング技術を進化させました。吸水によって種皮が柔らかくなり、胚軸がぐっと伸びて種皮を押し脱ぐ際、折りたたまれていた左右の翼が一気に外側へと展開することで、あの立体的なバタフライ形がパッと広がるのです。自然界がデザインした空間利用の美しさには、本当に驚かされますね。
貯蔵養分の自己分解と光合成器官への劇的な機能転換
また、子葉の役割は単なる「双子葉類の目印」にとどまりません。発芽直後の幼い植物体にとって、子葉は命をつなぐための極めて重要な貯蔵庫であり、最初のエネルギー生産工場でもあります。
アサガオの子葉は、地中から顔を出した直後は淡い黄色や黄緑色をしていますが、光を浴びるとわずか数時間のうちに葉緑素(クロロフィル)を急速に合成し、鮮やかな濃い緑色へと変化します。これは、内部に蓄えられた脂質やタンパク質をブドウ糖へと分解して発芽の初速をつけると同時に、光が当たった瞬間に自力で二酸化炭素を固定して糖を作り出す本格的な光合成器官へとシフトしている証拠なのです。
やがて本葉が何枚も展開して光合成の主力がそちらへ移ると、役目を終えた子葉は徐々に養分を使い果たして薄くなり、やがて黄色く枯れ落ちます。親植物からタネに託されたエネルギーを1滴残らず使い切り、独り立ちを果たした合図と言えるでしょう。このように、アサガオの子葉は形のおもしろさだけでなく、初期発生を確実に成功させるための生命維持システムとして極めて高度に設計されているのです。
水分と養分を効率よく運ぶ網状脈の役割
子葉が開いてからしばらくすると、その中心の間から待望の本葉(ほんば)が顔を出します。この本葉を手のひらに乗せて太陽の光に透かしてみると、表面に細かな筋がまるで道路網のように縦横無尽に走っているのが見えますよね。この筋は「葉脈(ようみゃく)」と呼ばれ、植物の体内をめぐるパイプラインである維管束が葉の中に細かく枝分かれして伸びたものです。アサガオの葉脈を観察すると、中心を通る太い1本の「主脈(しゅみゃく)」から、左右へ向けて「側脈(そくみゃく)」が枝分かれし、さらにその側脈から無数の細い脈が網の目のように細かく広がっていることが確認できます。このような葉脈の走行パターンを網状脈(もうじょうみゃく)と呼びます。
毛細血管のように隅々まで張り巡らされる物質輸送ネットワーク
網状脈は、双子葉植物の葉に共通して見られる決定的な特徴の1つです。これに対して、イネやススキなどの単子葉植物は、葉の根元から先端に向かって筋が平行に並んで走る「平行脈」を持っています。アサガオの葉を観察するとき、この複雑な網目模様を意識してみると、双子葉類としてのアイデンティティが葉の先端の1細胞にまで行き渡っていることを実感できます。
では、なぜアサガオをはじめとする双子葉類は、わざわざこのように複雑な網の目構造を発達させたのでしょうか。それには主に2つの大きな機能的メリットが存在します。第1の理由は、物質輸送における「効率性」と「安全対策(冗長性)」の両立です。葉の最も重要な任務は、太陽の光エネルギーを受け止めて二酸化炭素と水からデンプンを作り出す光合成です。光合成を活発に行うためには、根から吸い上げた水分を葉の端から端まで均一かつ迅速に届け、同時に葉肉細胞で合成されたブドウ糖などの有機養分をスムーズに回収して全身に送らなければなりません。
網状脈は、葉の隅々まで細かな毛細血管を張り巡らせているような状態であるため、どの細胞にも最短距離で水分と養分を届けることができます。さらに素晴らしいのは、一部の葉脈が虫に食われたり強風で破れたりして寸断されたとしても、周囲の網目状のバイパスを通って迂回ルートが確保される点です。これにより、葉の一部がダメージを受けても全体が枯死することなく、光合成を維持し続けることができるのです。
トラス構造のように広い葉肉をピンと支える力学的骨組み
第2の理由は、広い受光面を空間にピンと張るための力学的な支持機能です。アサガオの本葉は、浅く3つに裂けたハート形に近い「広三尖形(こうさんせんけい)」と呼ばれる幅の広い形をしています。このように面積の広い葉が自重や雨粒の重みで垂れ下がったり、風に吹かれてクシャクシャに折れ曲がってしまっては、太陽の光を十分に受けることができません。
太い主脈から放射状に伸びる側脈と細脈は、建築におけるトラス構造や傘の親骨と小骨のように機能しています。葉の内側から均等に張力(テンション)をかけることで、薄くて広い葉肉を平面状にピンと張り巡らせ、太陽光を最も効率的に受光できる理想的な角度を保ち続けているのです。
真夏の強い直射日光の下でも、アサガオが青々とした大きな葉を堂々と広げていられるのは、この強靭で柔軟な網状脈という骨格が葉の内側からしっかりと支えているからに他なりません。
地中深くに伸びる主根と側根の直根系構造
地上部でぐんぐんと伸びるつるや青々とした葉を支えるために、見えない土の中では根が驚くべきダイナミズムで活動しています。植物の根の張り方には大きく分けて2つの様式が存在しますが、アサガオの根を土から慎重に掘り出して水できれいに洗い流してみると、中央にひときわ太く硬い一本の軸となる根が存在することがわかります。この中心となる太い根を「主根(しゅこん)」と呼び、その主根の途中から左右へと何本も枝分かれして伸びる細い根を「側根(そっこん)」と呼びます。このように主根と側根が明確に役割分担された根の構造を直根系(ちょっこんけい)といい、双子葉類の典型的な特徴です。
幼根の垂直伸長と立体的な側根ネットワークの形成
タネから発芽する際、種皮を破って最初に土の中へ飛び出してくる「幼根(ようこん)」が、重力に従ってそのまま垂直下方へと真っ直ぐに突き進んで太くなったものが主根です。アサガオの主根は直進性が非常に強く、土の抵抗や小石を巧みにかわしながら、驚くべきスピードで地下深くまで到達します。そして、主根がある程度の深さに達して組織が成熟してくると、その側面の内鞘(ないしょう)と呼ばれる組織から、新しい側根が次々と水平や斜め下方向へ枝分かれして伸びていきます。
この主根と側根のコンビネーションは、土壌という3次元空間を極めて効率的に攻略するために最適化された構造です。太い主根が地下深くの安定した水分層へ到達する一方、無数に分岐した側根が浅い土壌層に網の目のように広がることで、土壌中の水分と肥料分(窒素、リン酸、カリウムなど)を満遍なく吸い上げる立体的な吸収ネットワークを構築するのです。
地下深くの水分獲得と強固なアンカー機能
直根系の最大の強みは、地下深くにある水分やミネラルを吸い上げる能力と、植物体を地面に強固につなぎ止めるアンカー(錨)としての力にあります。夏場の炎天下では、鉢や花壇の表土はあっという間に乾燥してカラカラになってしまいますが、直根系を持つ植物は、土壌深部の湿り気が残っているエリアまで主根が届いているため、一時的な水切れに対しても粘り強い耐性を発揮します。
また、アサガオのように上へ上へとつるを伸ばし、大量の葉を展開して風の抵抗を受ける植物にとって、地中深くまで杭のように打ち込まれた太い主根は、株全体が強風で倒れたり引き抜かれたりするのを防ぐ絶対的な支えとなります。
主根断裂が引き起こす不可逆的な吸水障害
しかしながら、この完璧に見える直根系という構造は、アサガオの栽培管理において決定的な弱点をも抱えています。主根は植物体にとっての「大黒柱」であり、この一本が根系全体の司令塔となっています。もし植え替えなどの際に主根の先端を誤ってちぎってしまったり、荒い扱いによってポキリと折ってしまったりすると、側根をいくら残していても、植物全体へ水を供給するメインパイプが完全に遮断されてしまいます。
直根性の植物は主根先端の再生能力が非常に乏しいため、一度主根を失うと新しい根を出す前に葉からの蒸散に耐えられなくなり、急速に萎れて回復不能な枯死に至ります。学校や家庭で「アサガオの苗は根をいじってはいけない」と口酸っぱく教えられるのは、まさにこの直根系という双子葉類特有の解剖学的性質に根差した、極めて科学的な理由があるのです。
輪状に並ぶ維管束と肥大成長を担う形成層
植物の体を支え、全身に水や栄養を循環させるためのパイプの束を「維管束(いかんそく)」と呼びます。維管束は、根から吸い上げた水分や無機養分を地上部へと吸い上げる「道管(どうかん)」と、葉の光合成で作られた糖などの有機養分を成長点や根へと送り届ける「師管(しかん)」という2種類の導管がセットになって束を作っています。この維管束が茎の内部にどのようにレイアウトされているかも、双子葉類と単子葉類を分ける極めて重要な解剖学的指標です。
同心円状に美しく整列する輪状配列の規則性
アサガオの瑞々しい緑色の茎をカミソリで水平にスパッと薄く輪切りにし、顕微鏡でその横断面を拡大観察すると、維管束がバラバラに散らばっているのではなく、茎の外周に沿って綺麗に円を描くように規則正しく並んでいるのがはっきりと確認できます。この秩序ある並び方を輪状配列(りんじょうはいれつ)と呼び、双子葉植物に共通する基本的な内部構造です。
輪状に並んだ個々の維管束をさらに高倍率で観察すると、必ず茎の内側(中心側)に道管が集まる「木部(もくぶ)」が位置し、茎の外側(表皮側)に師管が集まる「師部(しぶ)」が配置されています。水は内側を通り、栄養は外側を通るという厳密なルールが、円周上のすべての維管束で例外なく守られているのです。
二次肥大成長の原動力となる形成層の細胞分裂
そして、この木部と師部の境界部分に、双子葉類を語る上で欠かせない決定的な組織が帯状に介在しています。それが、盛んに細胞分裂を繰り返して新しい組織を生み出し続ける分裂組織「形成層(けいせいそう)」です。
形成層は、内側に向かって次々と新しい道管(木部)を付け足し、外側に向かって新しい師管(師部)を押し出していく組織です。この活発な細胞分裂によって、茎は時間の経過とともに同心円状に外側へと太く厚くなっていくことができます。この成長現象を「二次肥大成長(にじひだいせいちょう)」と呼びます。
街で見かけるサクラやイチョウのような巨大な樹木が、何十年もの歳月をかけて太い幹を作り出し、立派な年輪を刻むことができるのは、この形成層がリング状につながって途切れることなく活動を続けているからです。
つる性草本としての力学的強度と柔軟性の両立
アサガオは一年生の草本植物ですから、樹木のように何メートルもの分厚い木質部を作るわけではありません。しかし、体内の基本設計としてはれっきとした形成層を備えており、支柱に巻きついて高く登るにつれて茎の基部をしっかりと肥大させ、強靭な支持力を獲得していきます。輪状に配置された維管束と形成層の働きによって、アサガオの茎は「風に吹かれてもしなやかに受け流す柔軟性」と「重たい葉や花を先端まで支え上げる引っ張り強度」という、相反する力学的特性を完璧なバランスで両立させているのです。
単子葉類との違いを葉脈や根の構造から比較
植物の世界の多様性と進化の道筋を理解する上で、双子葉類と常に比較されるのが「単子葉類(たんしようるい)」です。地球上に繁栄する被子植物は、進化の初期段階において、双子葉類的な共通祖先から派生する形で単子葉類のグループを分化させました。アサガオが属する双子葉類が、太い主根や形成層による肥大成長といった「重厚で永続的な立体構造」を発達させてきたのに対し、イネやユリ、ツユクサなどに代表される単子葉類は、形成層をあえて手放し、ひげ根と散在する維管束によって「軽量で柔軟、かつスピーディに生長する草本体制」を進化させてきました。
対照的な生存戦略を一覧で読み解く解剖学的比較
学校の定期試験や入試問題では、アサガオとツユクサ、あるいはヒマワリとトウモロコシの体のつくりを比較する問題が定番中の定番として出題されます。しかし、単なる用語の丸暗記では、本番のプレッシャーの中で「どっちが網状脈でどっちがひげ根だったっけ?」と混乱してしまいがちです。両者の解剖学的相違点を、それぞれの機能的意味とともに一覧表で整理してみましょう。
| 比較する解剖学的項目 | 双子葉類(代表例:アサガオ、ヒマワリ) | 単子葉類(代表例:ツユクサ、イネ、ユリ) |
|---|---|---|
| 子葉の展開数 | 2枚(左右対称に開く双葉で、栄養貯蔵や初期光合成を行う) | 1枚(細長い葉が単独で抽出するか、種子内で胚盤として留まる) |
| 葉脈の走行パターン | 網状脈(太い主脈から側脈が網目状に枝分かれして広がる) | 平行脈(葉の基部から先端に向かって真っ直ぐ平行に筋が通る) |
| 地下部の根系構造 | 直根系(中心となる太い主根と、そこから分岐する細い側根) | ひげ根(主根が退化し、茎の基部から同径の細い根が束状に群生) |
| 茎の維管束の配置 | 輪状配列(茎の外周に沿って円を描くように規則正しく整列) | 散在配列(茎の横断面全体に無数の維管束が不規則に散らばる) |
| 形成層の有無と成長 | あり(木部と師部の間にあり、二次肥大成長で茎が太くなる) | なし(形成層を持たず、一次組織のみで構成され太くならない) |
| 花の構成パーツの数性 | 4または5の倍数(アサガオは萼5・花弁5・雄しべ5の5数性) | 3の倍数(外花被3・内花被3・雄しべ3または6など3数性が基本) |
| 主な身近な植物例 | アサガオ、アブラナ、サクラ、ヒマワリ、タンポポ、エンドウ、ダイコン | ツユクサ、イネ、トウモロコシ、コムギ、チューリップ、ススキ、タマネギ |
全体が調和した2つの美しいパッケージデザイン
この対比表をじっくり見つめてみると、植物の各パーツが単独で勝手に存在しているのではなく、全体の生態戦略と見事にリンクした「調和のとれたパッケージ」になっていることに気づかされます。
例えば、道端でよく見かける単子葉類のツユクサを思い出してみてください。葉は細長く、スーッと平行に葉脈が走っています。細長い葉を素早く伸ばすには平行脈が力学的に最も合理的であり、その葉を支える細い茎の中では、維管束がクッション材のように散在することで外からの圧力や曲げの力に対してしなやかな弾力性を発揮します。そして茎の根元からは、たくさんのひげ根が浅く広く張り巡らされ、倒伏を防ぎつつ表土の水分を素早く吸収します。
一方、アサガオに代表される双子葉類は、幅の広い葉をピンと張るための網状脈、重厚な枝葉を支えて養分を大量に送る輪状の維管束と形成層、そして大地深くに垂直の杭を打ち込むような直根系というように、すべてのパーツが「重厚で安定した立体構造」へと完璧に連動しています。散歩中やお庭の手入れの際に草花を見かけたら、葉っぱの筋や花の数をチラッと観察するだけで、その植物がどちらの生き方を選んだのかが手にとるように分かるようになりますよ。
5枚の花弁が完全に合着した合弁花類の仕組み
夏の朝の澄んだ空気の中で、青や赤紫の鮮やかな大輪を咲かせるアサガオの花。漏斗(じょうご)のような円錐形をしていて、まるでパラソルやメガホンのように切れ目なく綺麗に広がりますよね。この花をまじまじと見つめて、「アサガオの花びらは何枚あると思う?」と質問されたら、多くの方は「切れ目がない1枚の大きな花びら」と答えたくなるのではないでしょうか。しかし、植物学的な正解は「5枚」なのです。
離弁花類と合弁花類の分類学的基準
双子葉植物は、花弁(花びら)がどのような形態で配置されているかによって、さらに「離弁花類(りべんかるい)」と「合弁花類(ごうべんかるい)」という2つの主要なグループに分類されます。この分類は、双子葉類の進化の度合いを測る重要な指標となっています。
離弁花類とは、花びらが根元まで1枚ずつ完全に分かれて独立しているグループです。春に花びらがハラハラと1枚ずつ散るサクラや、アブラナ、バラ、エンドウなどがその代表例です。一方、合弁花類とは、隣り合う花びら同士が根元から、あるいは全体にわたって互いに癒合(ゆごう)し、1つの繋がった花冠(かかん)を形成しているグループを指します。アサガオは、この合弁花類のまさに教科書的な代表種なのです。
蕾の発生プロセスにおける花弁原基の癒合現象
アサガオの花が「5枚の花びらからできている」と言われても、咲いている姿を見る限りではなかなか実感が湧かないかもしれません。しかし、花の発生形態学(蕾が作られていく初期段階の顕微鏡観察)に目を向けると、その謎は鮮やかに解き明かされます。
茎の生長点から花の赤ちゃんである花芽が分化し始めたごく初期の段階では、アサガオの花びらも最初から筒状になっているわけではありません。顕微鏡で見ると、円周上に独立した5つの小さな突起(花弁原基)が綺麗に並んで発生してきます。つまり、スタート地点ではサクラやアブラナと同じように、5枚の独立した花びらとして生まれてくるのです。
ところが成長が進むにつれて、隣り合う花弁原基の境目の細胞が活発に分裂して互いに融合し、隙間を完全に埋めるようにして一体化していきます。その結果、蕾が膨らむ頃には、5枚の花びらが完全に合体した1枚の切れ目のないラッパ状の花冠へと仕上がるのです。私たちが目にするアサガオの花は、5枚の花びらが生命の精巧なプログラミングによって完璧にドッキングした芸術作品と言えます。
送粉効率の最大化と花粉保護の共進化戦略
植物が進化の過程で、花びらをバラバラの離弁花から一体化した合弁花へと変化させた背景には、受粉を媒介してくれる昆虫(送粉者)との極めて高度な共進化のドラマが存在します。離弁花のように花びらが四方八方に開いている構造は、どんな昆虫でも自由に出入りできる手軽さがある反面、昆虫が雄しべや雌しべに触れずに蜜だけを盗んでいってしまったり、雨風によって大切な花粉が流されてしまったりするリスクが常に伴います。
これに対してアサガオのような合弁花は、花冠を深い筒状や漏斗状に仕立て上げることで、奥深くに隠された蜜腺へと続く「専用の侵入ルート」を作り出しました。蜜を求めてやってきたハチなどの昆虫は、狭い筒の中へ体をぐいぐいと押し込まざるを得なくなります。その通路の途中に雄しべと雌しべを絶妙な位置で配置しておくことで、訪れた昆虫の背中や頭部に確実に花粉を擦りつけ、別の花へと運ばせる受粉の成功率を劇的に高めているのです。一見するとシンプルな朝顔の漏斗形には、何百万年もの時間をかけて昆虫との間で磨き上げられた、驚くべき生存の知恵が隠されているのですね。
花の表面に見られる曜と5数性の解剖学的特徴
アサガオの花が「元々は5枚の花弁が合体したものである」という事実は、咲き誇る花を正面や裏側から注意深く観察することでも、誰の目にも明らかな証拠として確かめることができます。朝一番に開いた花の正面を覗き込んでみてください。花の中心部から外側の縁(へり)に向かって、放射状にピンと伸びる筋のような白い帯が走っているのが見えませんか。この筋状の構造は全部で5本あり、園芸や植物学の世界では「曜(よう)」、あるいは中肋(ちゅうろく)と呼ばれています。
花弁合着の決定的証拠となる5本の曜(中肋)
「曜」の部分を指先でそっと触れてみると、花びらの他の薄い膜状の部分に比べて、少し硬くしっかりとした厚みを持っていることがわかります。これはまさに、かつて独立していた5枚の花弁それぞれの中心を縦に貫いていた主脈の痕跡そのものです。5枚の花びらが合体した際の太い背骨のような役割を果たしており、これがあるからこそ、あの大輪の薄い花冠が重力に負けずにピンと朝の空に向かって張っていられるのです。
また、アサガオの花は午後になると萎れていきますが、その閉じ方を観察してみると、この5本の曜が折り目となって、まるで丁寧に傘をたたむかのように内側へ規則正しく折りたたまれていく様子が分かります。曜は花の美しさを支える骨組みであると同時に、花を開閉させるためのヒンジ(蝶番)としても機能しているのです。
双子葉類に特有の数学的秩序「5数性」のルール
さらに花全体を解剖するように各パーツを注意深く数えていくと、双子葉植物に特有の数学的な規則性が次々と姿を現します。単子葉植物の花が「3の倍数」で構成されるのに対し、双子葉植物の花は各パーツが「4または5の倍数」で揃う傾向が極めて強く、これを「5数性(ごすうせい)」と呼びます。アサガオの花はこの5数性の完璧なお手本です。
- 萼片(がく):5枚(花の根元を外側からしっかりと包んで支える緑色の小さな葉)
- 花弁(花冠):5枚(表面に見える5本の曜が、5枚の花弁の結合を証明している)
- 雄しべ:5本(花冠の奥を覗き込むと、花粉をつけた花糸がちょうど5本並んでいる)
- 雌しべ:1本(中心に直立しているが、先端の柱頭はよく見ると3つに浅く分裂している)
花冠着生の雄しべ基部に備わる毛状突起の防衛機能
花冠をハサミで縦に優しく切り開いて内部を観察すると、さらに興味深い構造が見つかります。5本の雄しべは、花の中心から独立して生えているのではなく、その花糸(かし)の根元が花びらの内壁に直接べったりと合着しています。これを「花冠着生(かかんちゃくせい)」といい、合弁花類に多く見られる特徴です。
そして雄しべの足元をルーペで拡大してみると、びっしりと白い細かな毛が密生しているのが確認できます。この毛には極めて実践的な役割があります。1つは、奥深くにある蜜腺から分泌された甘い花蜜が、外の熱気や乾燥によって蒸発してしまうのを防ぐ保湿カバーの役割。そしてもう1つは、受粉の役に立たない極小のアリなどが花の奥へ潜り込んで蜜だけを横取りするのを物理的に阻む「進入防止フェンス」の役割です。
子房内部の3室構造と最大6個の種子形成メカニズム
花の中心にすっと伸びる雌しべの根元には、ぽっこりと丸く膨らんだ「子房(しぼう)」が存在します。将来タネを包む果実になる部分ですね。この子房を横にスパッとカミソリで切断してみると、内部が薄い仕切り壁によって正確に「3つの部屋(子房室)」に分かれているのが観察できます。柱頭が先端で3つに分かれていたのは、この3つの部屋に対応していたわけです。
そしてそれぞれの部屋の中を覗き込むと、白くて小さな胚珠(はいしゅ:受精して将来タネになる粒)が仲良く2個ずつ、合計で6個(2個×3室)綺麗に並んで鎮座しています。開花した朝にすべての胚珠が無事に受粉・受精を果たすと、秋には1つの果実から最大で6個の黒いタネが収穫できることになります。花びらの表面から子房の奥底に至るまで、アサガオの生殖器官には寸分の狂いもない見事な構造美が貫かれているのです。もし大切に育てているアサガオに実がつかなかったり、タネができる前に花ごと落ちてしまったりする場合は、受粉環境や栄養バランスに原因があるかもしれません。具体的な対処法は、アサガオの種ができない原因と実が落ちる理由と対策で詳しく掘り下げています。
胚乳がなく子葉に栄養を蓄える無胚乳種子の構造
夏の終わりに受粉を終えたアサガオの花は、花冠を落として子房を丸く太らせ、秋風が吹く頃にはカラカラに乾いた茶色い果実(蒴果:さっか)へと実を結びます。果皮がパカッと割れると、中から黒くて硬い、独特の丸みを帯びたタネが転がり出てきます。このタネの内部構造にも、理科のテストや植物形態学において極めて重要視される大きな特徴が存在します。それが「無胚乳種子(むはいにゅうしゅし)」という発生学的な性質です。
重複受精における胚と胚乳の発生ドラマ
被子植物がタネを作るとき、めしべの根元にある胚珠の中では「重複受精(ちょうふくじゅせい)」という極めて高度な受精プロセスが展開されます。花粉管を通ってやってきた2つの精細胞のうち、1つの精細胞は卵細胞と合体して将来の植物の体そのものになる「胚(はい)」を作ります。そしてもう1つの精細胞は、2つの極核を持つ中央細胞と合体して「胚乳(はいにゅう)」という栄養組織を作ります。
胚乳とは、発芽して自力で光合成ができるようになるまでの間、幼い植物が生きていくためのエネルギー源(デンプン、脂質、タンパク質など)をたっぷり蓄えておく、いわば「親植物が持たせてくれたお弁当箱」のような組織です。被子植物の種子は、このお弁当箱(胚乳)を成熟期までどのように扱うかによって、大きく2つのタイプに分かれます。
| 種子の発生的分類 | 成熟時の主な養分貯蔵場所 | 子葉の形態と果たしている機能 | 代表的な植物の例 |
|---|---|---|---|
| 無胚乳種子 | 子葉(胚の一部である子葉が養分を吸って巨大化) | 極めて肉厚で大型。養分貯蔵庫となり、発芽初期の栄養を直接供給する | アサガオ、ダイズ、エンドウ、インゲンマメ、ヒマワリ、アブラナ、クリ |
| 有胚乳種子 | 胚乳(独立した三倍体の栄養組織がそのまま残存) | 小型で薄い膜状、または胚乳から養分を吸い上げる器官(胚盤)に特化 | イネ、トウモロコシ、コムギ、ユリ、チューリップ、カキ、オシロイバナ |
胚乳の養分をすべて子葉へ吸い上げる劇的な転流プロセス
私たちがお米として毎日美味しく食べている白米や、トウモロコシの粒の大部分は、成熟した種子の中にたっぷりと残された胚乳そのものです。これらを有胚乳種子と呼びます。単子葉植物の多くはこのスタイルをとっており、子葉は小さく留まるか、胚乳から栄養を吸い上げるストローのような役割(胚盤)に徹しています。
これに対してアサガオをはじめとする無胚乳種子は、種子が成熟していく発生プロセスにおいて、驚くべき戦略をとります。受精直後はアサガオのタネの中にも確かに胚乳組織が作られ、そこに養分が一時的に蓄積されていきます。ところが、胚の一部である「2枚の子葉」が急速に成長するにつれて、隣にある胚乳から蓄えられた養分を怒涛の勢いですべて自分の体内へと吸い上げてしまうのです。
その結果、養分を完全に吸い取られた胚乳組織はペラペラに退縮し、最終的には種皮の内側に張り付く痕跡的なごく薄い膜として残るだけになります。こうして、タネの内部空間のほぼ100%を、養分を満載してパンパンに太った「2枚の子葉」が占領することになるのです。お弁当箱の中身を、食べる前に全部自分のお腹(子葉)の中に詰め込んでから旅に出るようなイメージですね。
硬い種皮の中に折りたたまれた肉厚子葉の観察
アサガオの硬いタネを一晩ぬるま湯につけてふやかしてみると、カッターで簡単に種皮を剥くことができます。黒い殻を剥ぎ取ると、中から白っぽくてみずみずしい、分厚い組織がぎっしりと詰まっているのが現れます。一見すると「これが大きな胚乳かな?」と錯覚してしまいますが、ピンセットでそっと隙間を広げていくと、それが複雑に折りたたまれた「2枚の肉厚な子葉」であることに誰もが驚かされます。
アサガオの種子に含まれる子葉には、発芽のための高密度な脂質(油分)やタンパク質が濃縮されています。独立した胚乳組織を介することなく、子葉自身が蓄えたエネルギーを直接代謝して幼根や胚軸を急速に伸ばすことができるため、アサガオは深く暗い土の中からでも力強く地上へと芽を突き出すことができるのです。
なお、植物の進化においては双子葉類の多くが無胚乳種子を選択していますが、カキやオシロイバナのように「双子葉類でありながら胚乳を残す有胚乳種子の例外」も存在します。こうした例外が存在するからこそ、アサガオの「双子葉類・合弁花類・無胚乳種子」という三拍子揃った美しい規則性は、植物形態学の基礎を学ぶ上で最高の教材として愛され続けているのです。
双子葉類のアサガオに見る生態と栽培・観察の要点
アサガオが双子葉類であるという解剖学的な事実は、単なる教科書の中の分類知識にとどまらず、実際の園芸栽培や日々の観察における数々の生態現象と密接に結びついています。なぜアサガオの種まきは初夏の暖かい時期に行わなければならないのか、なぜ移植によってあっけなく枯れてしまうことがあるのか、そしてなぜ支柱に対して寸分の狂いもなく決まった方向へと巻きついていくのか。これらの日常的な疑問の背後には、植物が厳しい自然環境を生き抜くために獲得してきた驚くべき生理メカニズムが存在します。ここからは、栽培管理を成功させる実践的なノウハウから、試験対策で役立つスマートな知識の整理法まで、アサガオの生態と観察の要点を詳しく掘り下げていきましょう。
発芽の3要素と本葉に生える微細な毛の働き
春先になると色とりどりのアサガオのタネが園芸店に並びますが、早く花が見たいからといって4月の肌寒い時期に慌ててまいてしまうと、一向に芽が出ず土の中で腐ってしまうことがあります。タネが休眠を打破して発芽を開始するためには、理科の授業でも習う「発芽の3要素」が適切なバランスで満たされる必要があります。
酵素活性と細胞呼吸を促す発芽の3要素
タネが目覚めるために欠かせない3要素は、「水分」「空気(酸素)」「適度な温度」です。それぞれの役割を整理してみましょう。
- 水分:硬い種皮を軟らかくして吸水膨張させ、種子内部の加水分解酵素を活性化させて貯蔵養分の分解をスタートさせる
- 空気(酸素):吸水によって代謝を始めた細胞が活発な細胞呼吸を行い、幼根や胚軸を伸ばすためのエネルギー(ATP)を生産する
- 適度な温度:体内の化学反応を司る各種酵素が最も効率よく働くための環境を提供する
ここで特に見落としがちなのが「温度」です。アサガオは熱帯アジアや熱帯アメリカなどの温暖な地域を原産とする植物であるため、発芽に適した温度(発芽適温)は概ね20℃〜25℃と、春まき草花の中でも高めに設定されています。日中の最高気温だけでなく、夜間の地温もしっかりと上がってくる5月中旬から6月上旬あたりが、タネまきに最も適したベストシーズンと言えます。
硬実種子の特性と発芽率を高める芽切り処理
アサガオの種皮は非常に硬く、そのままでは水を通しにくい「硬実種子(こうじつしゅし)」の性質を持っています。市販されているタネの多くは、あらかじめ機械や薬品で微細な傷をつけて吸水しやすくする処理が施されていますが、自家採種したタネをまく場合は、吸水がうまくいかずに発芽が揃わないことがあります。
自家採種のタネをまく際は、タネの丸い背中側の種皮を爪切りや紙やすりでほんの少しだけ削り、白い胚がわずかに見える程度に傷をつける「芽切り(めぎり)」を行うと、吸水が劇的に早まり発芽率が安定します。ただし、へこんでいる側(へそ側)には大切な幼根が眠っているため、削る位置を間違えないよう注意してくださいね。
本葉に密生する粗毛(毛状突起)の構造と役割
無事に発芽して子葉が開き、しばらくすると茎の中心からギザギザとした「本葉」が顔を出します。この本葉を指先で優しく撫でてみると、少しザラザラとした独特の手触りを感じるはずです。ルーペや虫眼鏡を使って葉の表面や葉柄(ようへい:葉の柄の部分)を拡大して観察してみると、びっしりと透明な短い毛が生えているのが分かります。この毛は植物学で「粗毛(そもう)」や「毛状突起(トライコーム)」と呼ばれています。
この葉や茎に生えた微細な毛には、主に2つの重要な機能があります。1つは、強い直射日光や強風による水分の過剰な蒸発を防ぎ、葉の表面温度を快適に保つこと。そしてもう1つがつる植物ならではの機能で、支柱や周囲のネットに巻き付いた際に、自重や風の力でツルがツルツルと滑り落ちないよう強力な摩擦力を生み出す「滑り止めスパイク」としての役割です。
2/5葉序による受光効率の最大化
アサガオの本葉は、茎に対して適当に生えているわけではありません。茎を見下ろすと、葉は一定の角度を保ちながら螺旋状に配置されています。アサガオの葉の付き方は、植物学で「2/5葉序(にぶんのごようじょ)」と呼ばれ、茎の周りを螺旋を描いて2周する間に5枚の葉が等間隔(約144度の角度)で互い違いに出てくる規則性を持っています。
この配列により、上にある葉が下の葉に重なって日光を遮ってしまうのを防ぎ、すべての葉が余すところなく太陽光を受け止められるようになっています。何気ない葉の付き方や微細な産毛にまで、光と空間を効率よく獲得するための緻密な生存戦略が宿っているのです。
直根性のアサガオが植え替えを極端に嫌う理由
園芸ビギナーの方がアサガオを育てるときに、最も陥りやすい失敗の1つが「苗の植え替え(移植)」によるトラブルです。小さめのビニールポットで可愛らしい苗を育て、大きくなってきたからと大きなプランターやお庭の花壇に植え替えたところ、翌日にはぐったりと首を垂れて萎れてしまい、そのまま復活せずに枯れてしまったという経験をお持ちの方もいらっしゃるのではないでしょうか。
この悲しい失敗の根本的な原因は、前章でも解説したアサガオの根の構造、すなわち「直根性(直根系)」という双子葉類ならではの性質にあります。
植物の根には、傷ついても脇からどんどん新しい根を再生させる能力が高いタイプ(ヒゲ根を持つ単子葉類や、浅い根を広く張る植物)と、中心となる主軸の再生能力が極めて低いタイプ(直根性の植物)があります。アサガオは完全に後者であり、園芸の世界では「移植を極端に嫌う植物」の筆頭格として知られています。
主根先端の分裂組織の脆弱性と枯死に至るプロセス
アサガオの主根の先端には、活発に細胞分裂を繰り返しながら地中深くへと潜り込んでいく非常にデリケートな分裂組織(生長点)があります。苗をポットから引き抜く際に土が崩れてしまったり、根が引っ張られてこの主根の先端がプチッと断裂してしまうと、植物体は一瞬にして致命的なダメージを負います。
主根の先が失われると、地中深くから水を吸い上げるポンプ機能が停止してしまうため、いくら上からたっぷりと水をあげても、葉から蒸散していく水分のスピードに吸水が追いつかず、細胞の張力が失われて植物全体が萎縮してしまうのです。
移植を成功させるための実践的アプローチ
アサガオを元気に美しく育てるためには、以下のポイントを徹底することが成功への近道です。
1. 基本は「直まき」で育てる
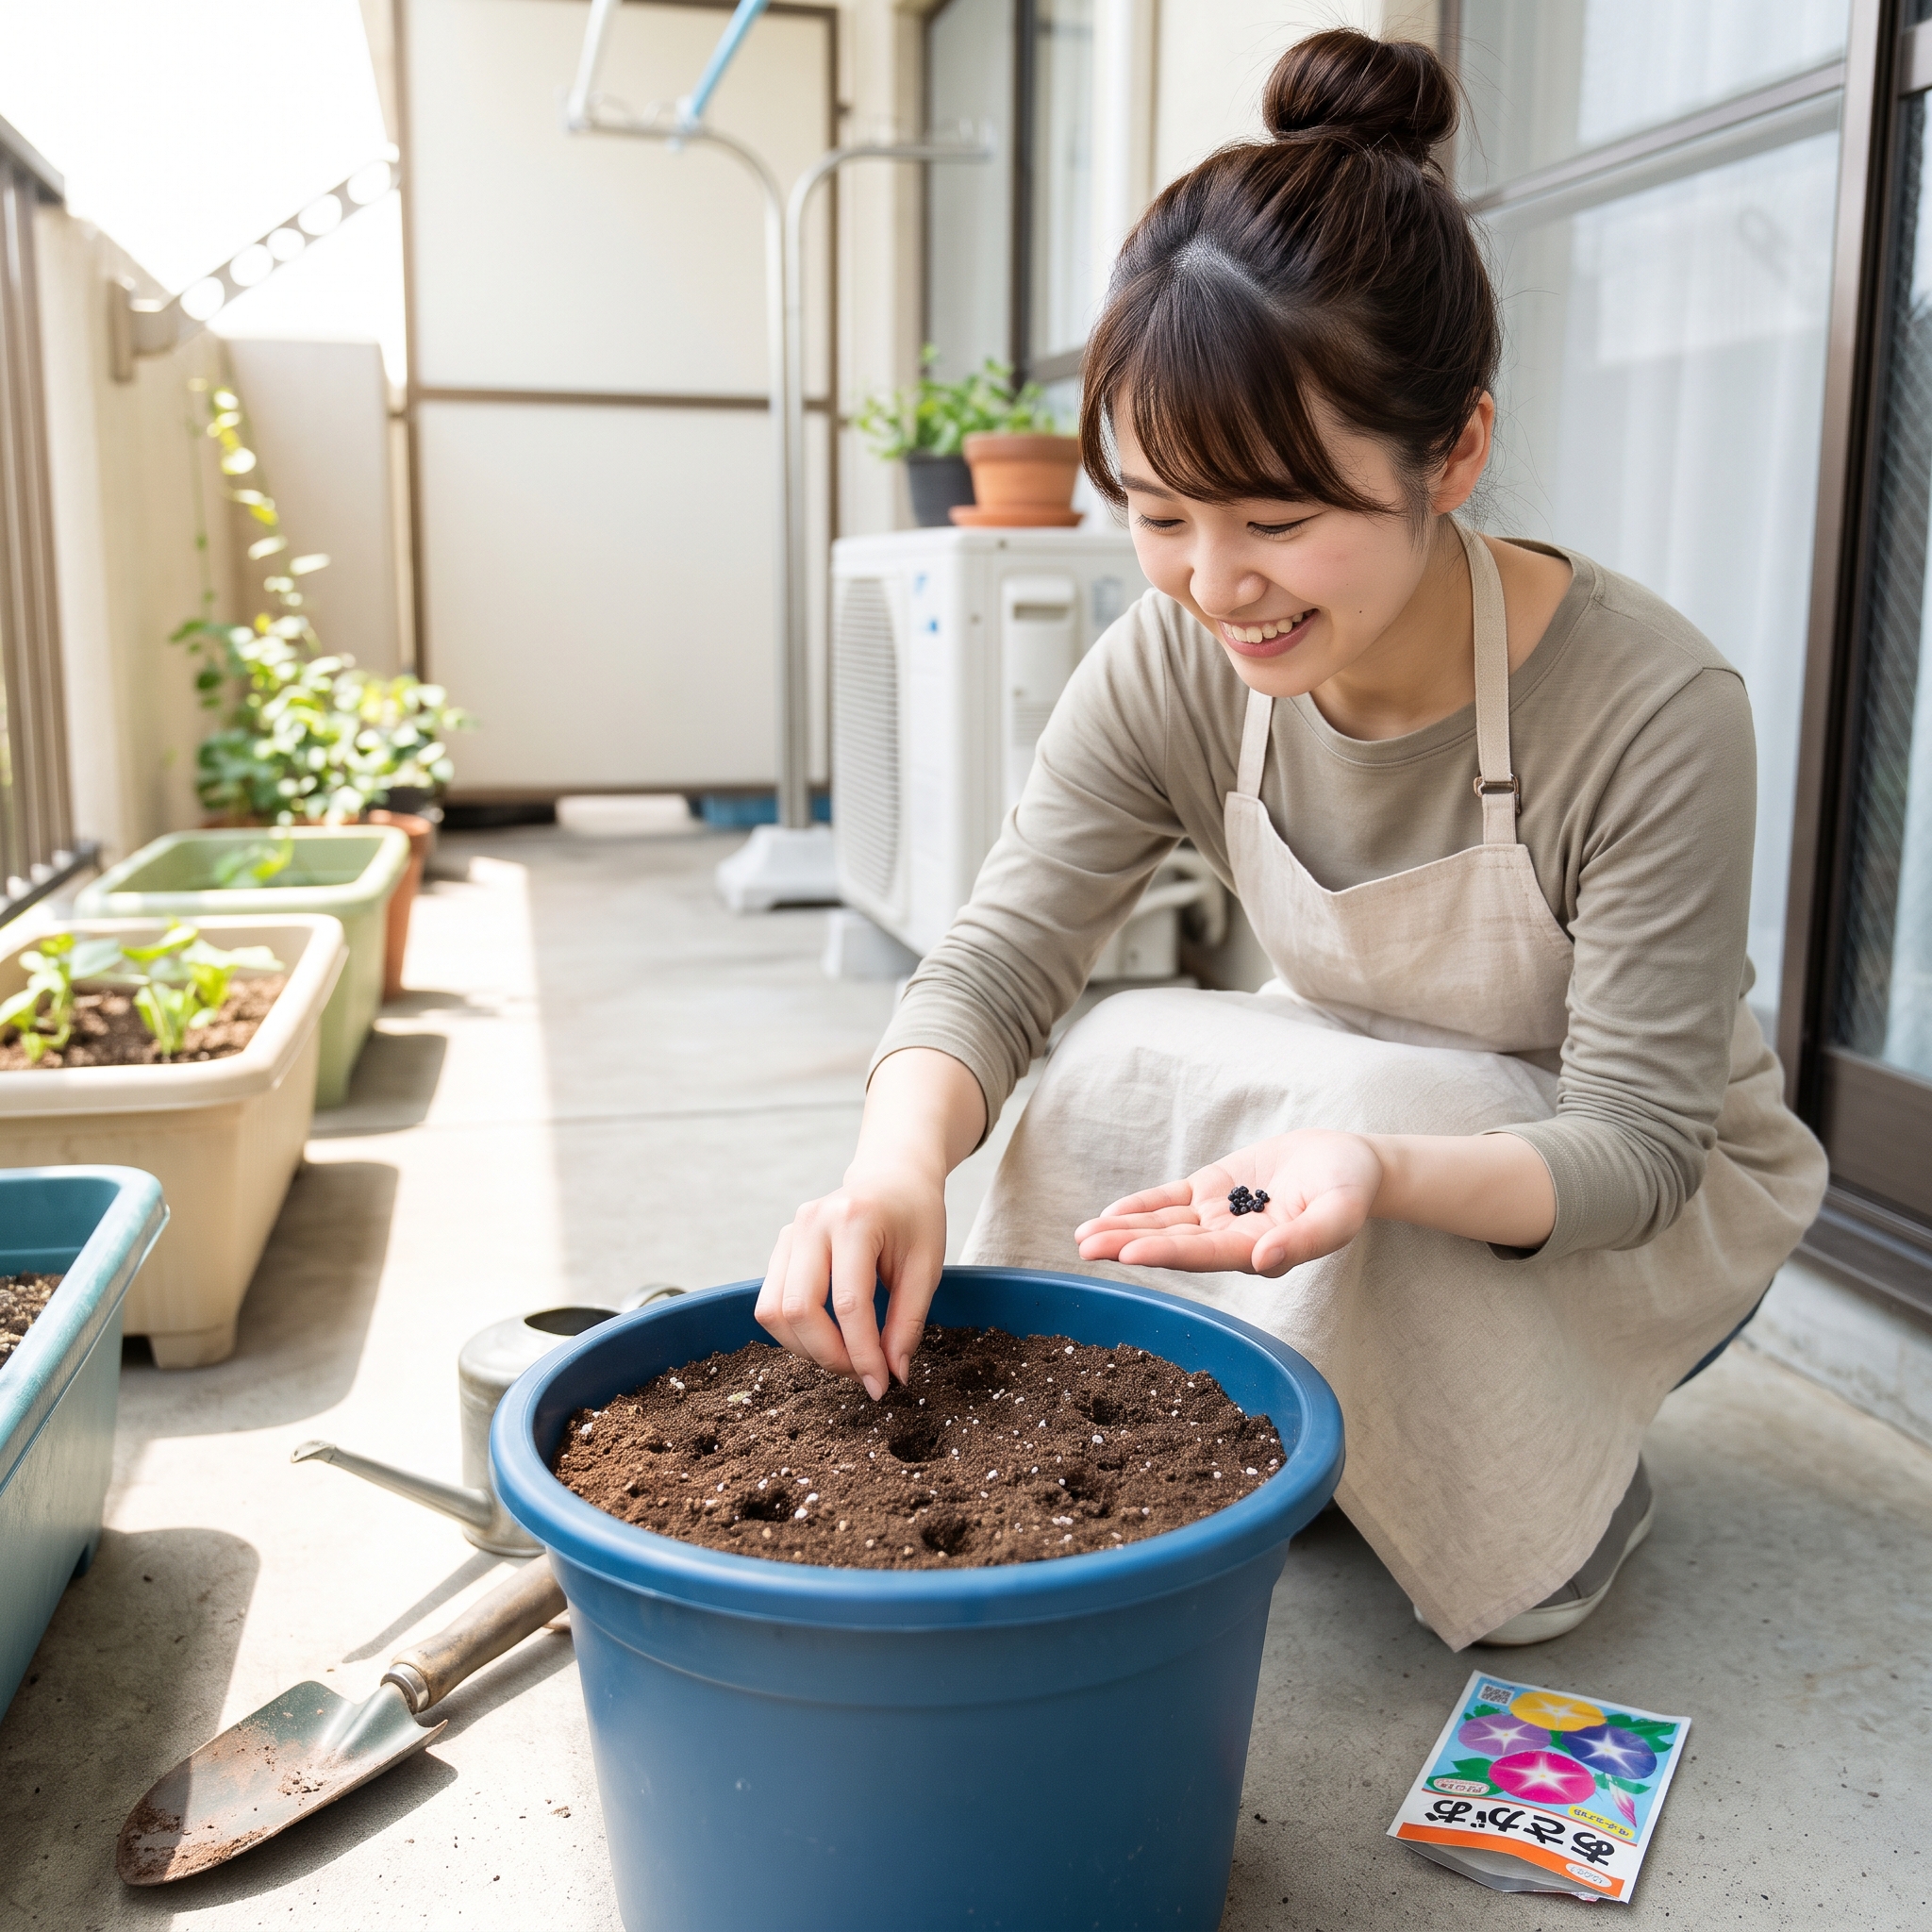
一番確実で安全な方法は、最初から花を咲かせたい大きめの鉢やプランター、あるいは花壇の地面に直接タネをまく「直まき(じかまき)」です。これなら根を移動させる必要が一切ないため、根系を傷つけるリスクを完全にゼロにできます。
2. ポット育苗なら「根鉢を絶対に崩さない」
やむを得ずビニールポットなどで苗を作ってから植え替える場合は、土がしっかり乾いて固まるのを待つか、逆に崩れない適度な湿り気を保った状態で、ポットの底を優しく押し上げて土の塊(根鉢:ねばち)をすっぽりと抜き取ります。根が露出するほど土をほぐしたり、古い土を落としたりするのは絶対に厳禁です。そのまま掘っておいた植え穴へそっと落とし込み、周りに土を寄せて優しく鎮圧しましょう。
3. そのまま植えられる「ジフィーポット」の活用
初心者の方に特におすすめなのが、ピートモスなどを主原料にした生分解性の育苗ポット(ジフィーポットなど)を利用する方法です。ポットごとそのまま土の中に埋め込むことができるため、デリケートな主根に一切触れることなく安全に定植することができます。
植物の持つ解剖学的な特徴を正しく理解していれば、日々の園芸作業における「やっていいこと」と「やってはいけないこと」の理由が明確になり、栽培の失敗を劇的に減らすことができるようになります。なお、直根性のアサガオは根を深く健康に張らせるための適切な水分管理も欠かせません。日々の水やりのタイミングや根腐れを防ぐポイントについては、朝顔の水やり頻度と枯らさない水分管理のコツでも詳しく解説していますので、あわせて参考にしてみてくださいね。
つるの巻き方が右巻きと定義される学術的根拠
本葉が5〜6枚ほど展開してくると、茎の先端がすっと立ち上がり、周囲の支柱を探すように空中でユラユラと円を描き始めます。この円を描く運動は植物学で「回旋運動(かいせんうんどう)」と呼ばれ、何かに触れるとその刺激を感じ取って巻き付く「接触傾性(せっしょくけいせい)」という性質を持っています。支柱に巻きついたアサガオのつるを眺めていると、ふと「このつるの巻き方は、右巻きなのだろうか? それとも左巻きなのだろうか?」という疑問が湧いてきませんか。
実はこの「つるの巻き方向」をめぐる呼び名には、植物学の歴史の中で長年にわたる激しい混乱と議論が存在しました。
牧野富太郎説と主観的視点による「左巻き」の歴史的背景
かつて、日本の植物学の父として名高い牧野富太郎博士をはじめとする昔の国内の学者たちは、アサガオの巻き方を「左巻き」と呼んでいました。これは、つるの成長点(先端)に自分自身が立っていると主観的に想像し、「先端が前進しながら、左へ、左へとカーブを切って巻き込んでいく」という感覚的な視点に基づいた呼び方でした。昭和の古い理科の教科書や園芸書に「アサガオは左巻き」と書かれていることがあるのは、この牧野説が広く普及していたためです。
右ネジの法則と国際標準(dextrorse)への統合
しかし、この主観的な見方は国際的な科学の現場や、工学・物理学といった他の学問分野との整合性を欠くという大きな問題を抱えていました。物理学や機械工学の世界では、ボルトやネジの進行方向を定義する客観的なルールが存在します。支柱を正面から眺めたとき、手前を通るつるが「左下から右上に向かって右肩上がりに進む」軌跡を描く場合、これは右手で親指を立てて握ったときの4本の指の回転方向、すなわち「右ネジの進む方向(Z巻き)」と完全に一致します。
現在では、日本学術会議が定めた学術用語集の改訂を経て、国際標準の植物学用語(dextrorse)および工学的な定義と一致させる形で、公式に「アサガオのつるは右巻きである」と統一して定義されています。現代の学校教育や標準的な図鑑では、この客観的視点に基づいた「右巻き」が正解となります。
微小管の配向とオーキシンによる接触傾性の分子制御
このつるの巻き方向は、日当たりや風向きなどの環境によって気まぐれに変わるものではありません。植物の細胞内にある微小管(細胞骨格)の並び方や、細胞壁を緩めるタンパク質の働きなどをコントロールする強固な遺伝子によって厳密に決定されています。
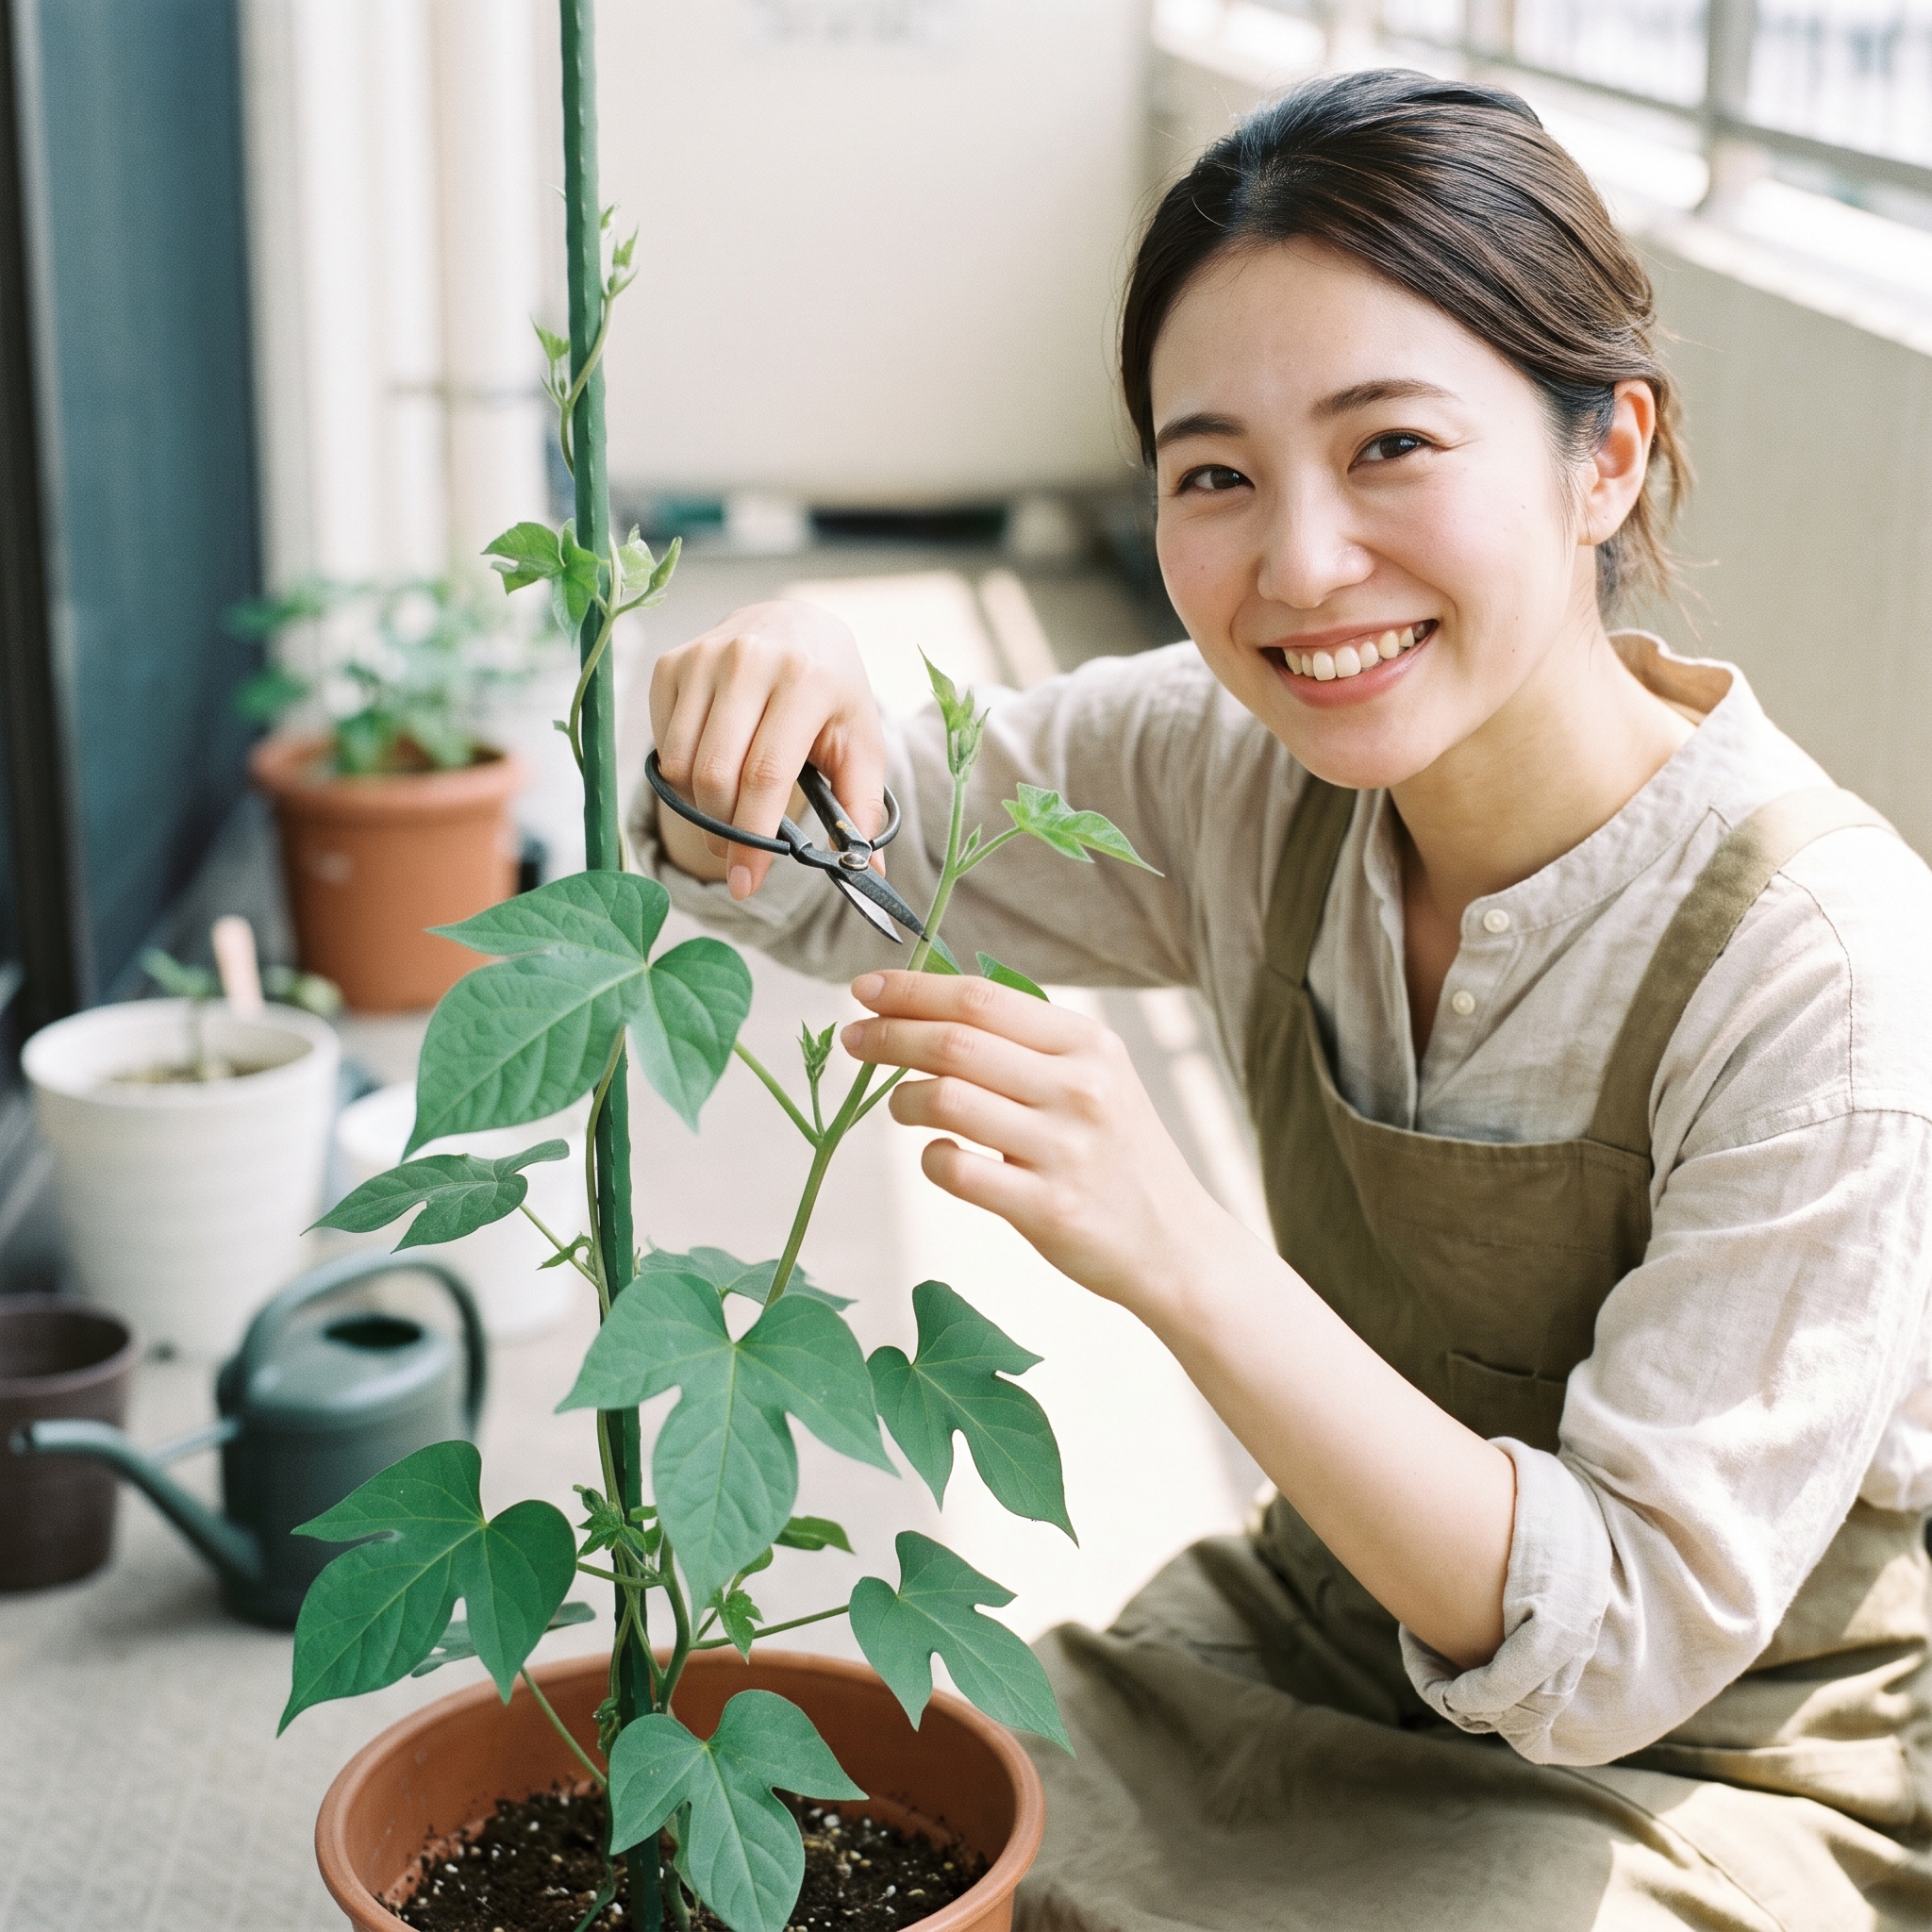
つるが支柱に触れると、接触面側の成長が植物ホルモンであるオーキシンの偏在や膨圧変化によって抑制され、逆に外側の細胞が旺盛に伸長します。この内外の成長速度の差によって茎が内側へと曲がり、支柱を締め付けるように巻き付いていくのです。もし人間が手作業でつるをほどき、無理やり反対向き(左巻き)に支柱へ巻き直したとしても、新しく伸びてくる先端部分はすぐに自力で方向を修正し、何事もなかったかのように本来の美しい「右巻き」の螺旋へと戻っていきます。小さなつるの先端に刻み込まれた、生命の驚くべきプログラムの正確さには思わず感嘆させられますね。実際に支柱を立ててつるを上手に誘引したり、摘芯を行って花数を増やしたりする具体的な栽培テクニックについては、100均グッズを活用した朝顔の育て方と摘芯のコツで分かりやすく手順をまとめています。
夜の長さが関係する短日植物の花芽形成
アサガオの最も感動的な瞬間といえば、何と言っても鮮やかな花が咲くことですよね。では、アサガオは一体どのようにして季節を感じ取り、「そろそろ花を咲かせる準備をしよう」と蕾(花芽:はなめ)を作るのでしょうか。「夏の花なのだから、昼の時間が長くて太陽がサンサンと照りつける時期に咲くのでは?」と思われがちですが、生理学的な事実はまったくその逆です。
アサガオは、昼の長さが短くなり夜の長さが長くなる季節に花芽をつける「短日植物(たんじつしょくぶつ)」の代表例です。ただし、「短日」という言葉には少し誤解を招きやすい罠があります。植物生理学の進歩によって明らかになったのは、植物が感知しているのは実は「昼の長さ(明期)」ではなく、途切れることのない「連続した夜の長さ(暗期)」であるという驚くべき事実でした。
アサガオが花芽を作るためには、一晩の完全な暗闇の長さが一定の基準(限界暗期:げんかいあんき、品種にもよりますが概ね8時間〜9時間程度)を超える必要があります。光を感じ取るセンサーである葉の「フィトクロム」という色素タンパク質が、夜の長さを極めて正確にストップウォッチのように計測しているのです。
フィトクロム(Pr/Pfr)による暗期測定の仕組み
フィトクロムには、赤色光を吸収すると活性型(Pfr型)に変わり、遠赤色光を吸収するか暗闇に置かれるとゆっくり非活性型(Pr型)に戻るという性質があります。昼の間に蓄積されたPfr型が、夜の暗闇の中で時間をかけてじわじわとPr型へと戻っていきます。この変化にかかる時間を通じて、植物は「夜がどれくらい続いているか」を正確に測っているのです。
光中断がもたらす花芽形成の阻害現象
この仕組みを証明する有名な実験として「光中断(こうちゅうだん)」があります。たとえ10時間のたっぷりとした長い夜を用意したとしても、その暗闇のちょうど真ん中あたりで、たった数分間だけ懐中電灯などの光をパッと葉に当ててしまうと、アサガオは「あ、夜が途中で途切れて、短い夜が2回来ただけだな」と認識してしまい、花芽の形成を完全にストップしてしまいます。どれだけトータルの暗闇が長くても、「連続した暗闇」でなければ意味がないのです。
フロリゲン(FTタンパク質)の合成と師管長距離輸送
十分な長さの連続した暗期を感知すると、葉の細胞内で花成ホルモンの実体である「フロリゲン(FTタンパク質)」が合成されます。このフロリゲンが葉脈から維管束の師管を通って茎の先端の生長点へと長距離輸送されると、これまで葉や茎を作っていた細胞分裂の遺伝子スイッチが切り替わり、蕾を作る花芽分化が力強くスタートします。
近年、ベランダ栽培などでよく見られるトラブルとして、「夏になってもつるや葉ばかりが生い茂り、ちっとも蕾がつかない」という現象があります。その原因の多くは、近くにある街路灯の明かりや、室内のカーテンの隙間から漏れ出るリビングの照明です。人間にとっては薄暗いと感じる程度の明かりでも、敏感なアサガオの光センサーにとっては「昼間」と判定されてしまい、花芽が作れなくなってしまうのです。花をたくさん咲かせたい場合は、夜間にしっかりと暗闇が確保できる場所に鉢を置いてあげることが大切です。
夕方の暗がりを体内時計が感知して開花する仕組み
無事に花芽が育ち、明日にも咲きそうな大きな蕾ができると、いよいよ開花の瞬間がやってきます。「朝顔」という名前の通り、アサガオは朝の涼しい時間帯に清々しく咲く花として親しまれていますが、彼らは一体どうやって朝が来たことを知るのでしょうか。「早朝の朝日が昇る光を浴びて、パッと花を開くのだろう」と思っていませんか。実はこれも、直感とは大きく異なる非常にドラマチックな体内時計のメカニズムによってコントロールされています。
植物生理学の研究によって明らかになっているのは、アサガオが開花のカウントダウンを開始するスイッチは、朝の光ではなく「前日の夕方に訪れる暗転(明から暗への切り替わり)」であるという事実です。
夕方の暗転がリセットする概日時計のタイマー機構
夕方、太陽が沈んで周囲が薄暗くなったその瞬間に、アサガオの蕾の細胞内に備わっている「概日時計(体内時計)」が正確にリセットされ、チクタクと時計の針が動き始めます。そして、夕方の暗転から約8時間〜10時間という決まった時間が経過すると、花びらの根元や曜の細胞が一斉に水分を吸い上げて膨圧を高め、外側へ向けて花冠を押し広げるように展開運動を開始します。
夕方6時(18時)に暗くなったとすると、そこから約9時間後は「翌朝の午前3時〜4時」になります。そう、アサガオは人間が起きてくる朝や太陽が昇る時間よりもはるか前、まだ夜空に星が瞬く未明の完全な暗闇の中で、すでに開花を完了させていることが多いのです。
朝起きて庭に出たとき、すでに満開のアサガオが出迎えてくれるのは、私たちが眠っている深夜のうちに体内時計のタイマーが作動し、夜明け前から花びらを広げて待っていてくれたからなのですね。
夜間温度と開花時刻の相関関係
この開花時刻の決定には、周囲の「温度」も密接に関わっています。夜間の気温が高い真夏は体内時計の進み方が早まり、午前2時〜3時といった非常に早い未明に開花します。逆に、秋風が吹き始める9月下旬や10月頃になると、夜間の気温が下がるため代謝が緩やかになり、タイマーの作動が遅れて午前7時〜8時過ぎの明るくなってからようやく開き始めるようになります。季節によって咲く時間がズレるのも、温度と光の情報を巧みに統合して生きる植物ならではの精密なシステムと言えるでしょう。
人工暗黒処理による昼間の開花実験
この夕方の暗転トリガーを応用すると、とても面白い実験ができます。開花前日の昼間(例えば正午頃)に、蕾がついたアサガオにダンボール箱をすっぽりかぶせて真っ暗にしてあげると、アサガオは「もう夕方が来た」と勘違いしてタイマーを作動させます。その結果、本来なら寝静まっているはずの夜の8時や9時頃に、部屋の中で見事に大輪の花を咲かせることができるのです。夏休みの自由研究などでも人気の高い、植物の体内時計をダイレクトに実感できる素晴らしい実験ですね。
試験対策に役立つ双子葉類と単子葉類の語呂合わせ
ここまで学んできたように、アサガオをはじめとする双子葉類と、イネやツユクサなどの単子葉類は、体全体の構造が美しく統一されています。しかし、中学入試や高校入試、定期テストなどの試験本番では、緊張から「あれ、網状脈って双子葉類だっけ? ひげ根ってどっちだっけ?」とど忘れしてしまう瞬間があるかもしれません。
そんなときに強力な味方となってくれるのが、昔から受験指導の現場で受け継がれてきたユニークな「語呂合わせ」です。理科の植物分野を瞬時に整理して思い出すための、代表的な鉄板フレーズをいくつかご紹介しましょう。
双子葉類の特徴をまとめる語呂合わせ
「主婦はもう大変そう」(しゅふはもうたいへんそう)
- 主(しゅ):主根と側根
- 婦(ふ・わ):輪状に並ぶ維管束
- もう:網状脈(もうじょうみゃく)
- 大変そう:双子葉類(そうしようるい)
毎日忙しく家事をこなす主婦の姿をイメージすると一発で頭に残りますね。双子葉類は「主根・側根」「輪状配列」「網状脈」の3点セットが完璧にリンクしていることがすんなり引き出せます。
単子葉類の特徴をまとめる語呂合わせ
「ひげ散らかして平気な男子」(ひげちらかしてへいきなだんし)
- ひげ:ひげ根
- 散らかして:維管束が散在している
- 平気な:平行脈(へいこうみゃく)
- 男子:単子葉類(たんしようるい)
朝の忙しい時間に無精髭を生やしたまま平気な顔をしている男子学生の姿が目に浮かぶような、インパクト抜群のフレーズです。単子葉類は「ひげ根」「散在維管束」「平行脈」の組み合わせであることを迷わずセットで思い出せます。
テストの問題用紙が配られたら、余白の隅にこの2つのフレーズをササッとメモしておくだけで、植物の分類に関する選択問題や記述問題で失点するリスクを大幅に減らすことができます。丸暗記だけに頼るのではなく、前章で解説したような「なぜその構造になっているのか」という機能的な背景を理解した上で語呂合わせを活用すると、知識が一生モノの記憶としてしっかりと定着しますよ。
合弁花類や無胚乳種子をスムーズに覚える暗記法
理科のテストでさらに受験生を悩ませるのが、「双子葉類の中の合弁花類と離弁花類の分類」や、「無胚乳種子と有胚乳種子の区別」といった、もう一段階深いレベルの細分化問題です。「アサガオは合弁花類で無胚乳種子」と単体で覚えるだけでなく、他の主要な植物と一緒にグループごと頭にインプットしてしまうのが最も効率的なアプローチです。こちらも受験界隈で定評のある定番の語呂合わせを整理しておきましょう。
合弁花類を覚える語呂合わせ
「ごめん、朝つついた短気なヒマ人」(ごめん、あさつついたたんきなひまじん)
- ごめん:合弁花類(ごうべんかるい)
- 朝:アサガオ
- つついた:ツツジ
- 短:タンポポ
- 気な:キク
- ヒマ人:ヒマワリ
タンポポやヒマワリなどのキク科植物は、一見すると花びらが散らばる離弁花のように見えますが、実は小さな合弁花がびっしり集まった「頭状花序」という構造を持っています。この語呂合わせを使えば、試験でひっかけ問題として狙われやすいキク科植物とアサガオを確実に合弁花グループとしてマークできます。
無胚乳種子を覚える語呂合わせ
「クリーナーで朝から危ないマメ拾い」(くりーなーであさからあぶないまめひろい)
- クリー:クリ
- ナー:ナズナ
- 朝から:アサガオ
- 危ない:アブラナ
- マメ拾い:マメ科植物(エンドウ、ダイズ、インゲンマメ)
双子葉類の多くは無胚乳種子ですが、カキやオシロイバナのように「双子葉類なのに胚乳を持つ例外」が存在するため、問題作成者にとって非常に好都合な出題ポイントになります。このフレーズを唱えておけば、無胚乳種子の代表格であるアサガオやマメ科、アブラナ科を網羅でき、自信を持って解答欄を埋めることができるはずです。
暗記作業は単調になりがちですが、言葉の響きを楽しみながらリズムよく口ずさんで覚えることで、勉強の負担をグッと減らすことができますよ。
アサガオから学ぶ双子葉類の特徴と重要ポイント
ここまで、アサガオという身近で親しみ深い植物をガイド役にしながら、双子葉類が持つ形態的な特徴や体内の解剖学的構造、そして環境に適応するための巧妙な生理生態について、多角的な視点からじっくりと探究してきました。
発芽の瞬間に開く愛らしい2枚のバタフライ形の子葉、葉の隅々にまで水と養分を行き渡らせる網状脈、地中深くに真っ直ぐ突き進んで植物体を支える直根系の主根と側根、茎の周囲をリング状に取り囲んで肥大成長を担う維管束と形成層、花粉媒介者との対話の中で形作られた5数性の合弁花冠、そして次世代へのエネルギーをぎゅっと子葉に濃縮した無胚乳種子の構造。これらすべての要素が、ひとつの狂いもなく緻密に噛み合って「アサガオ」というひとつの命を形作っています。
理科の教科書に書かれている分類や用語は、単なるテストのための暗記記号ではありません。過酷な地球環境の中で、植物が光を求め、水を吸い上げ、子孫を確実に残すために、何千万年もの歳月をかけて磨き上げてきた驚くべき「生き残りのデザイン」そのものなのです。
今度アサガオの姿を見かけたときは、ぜひ立ち止まって、その葉の透かし模様や花の裏側、あるいは元気に巻きつくつるの先端をじっくりと観察してみてください。教科書の図表を眺めているだけでは気づかなかった、生命の息吹と造形美の面白さに、きっと心を動かされるはずですよ。
植物の栽培環境や品種ごとの特性、正確な管理方法や気候に応じた適期などは、お住まいの地域や毎年の天候によって大きく異なる場合があります。種まきや薬剤使用などの具体的な園芸作業にあたっては、種袋の記載や各メーカーの公式サイト、お近くの園芸専門店や専門家のアドバイスを適宜ご確認ください。
この記事の要点まとめ
- アサガオは被子植物の真正双子葉類ナス目ヒルガオ科に属する一年生つる植物
- 発芽時に展開する子葉は左右対称の2枚でチョウが羽を広げたようなバタフライ形
- 子葉は限られた種皮内に収まるため幾重にも折りたたまれてタネの中に格納される
- 本葉に見られる網状脈は主脈から側脈が分岐し効率的な物質輸送と葉の支持を担う
- 地下部の根系は太い中心軸の主根とそこから分岐する側根からなる直根系を形成する
- 直根系のため主根が傷つくと再生が難しくアサガオは移植を極端に嫌う性質を持つ
- 茎の断面では維管束が綺麗な輪状に配列し木部と師部の間に分裂組織の形成層がある
- 単子葉類は平行脈やひげ根や散在する維管束を持ち双子葉類とは体制が大きく異なる
- アサガオの花は5枚の花弁が完全に癒合して1つの漏斗状花冠を形成する合弁花類
- 花冠の表面に走る5本の曜や5本の雄しべや5枚の萼片は双子葉類の5数性を証明する
- 成熟した種子に独立した胚乳組織が残らず子葉に養分を蓄える無胚乳種子である
- 発芽には20度から25度程度の十分な温度が必要で初夏の5月中旬以降が適期となる
- つるの巻き方向は工学的な右ネジの進み方や国際基準に合致する右巻きと定義される
- 一定以上の連続した夜の長さを感知して花芽を誘導する典型的な短日植物である
- 開花時刻は朝の光ではなく前日夕方の暗転を起点とする体内時計により制御される